광환경 차이가 봄철 꿀벌 (Apis mellifera) 봉군의 외역활동 및 발달에 미치는 영향
Abstract
Honey bee foraging is driven by both internal colony needs, such as brood rearing and population strength, and external factors including temperature, humidity, and light. In early spring, when queens resume oviposition, adequate foraging is essential for brood development and colony recovery. To assess the role of light, we compared colonies placed in open field and bee-house. In 2024, seven open-field and twenty bee house colonies were monitored from February to May, with ambient temperature and humidity recorded every 10 minutes and adult bee numbers surveyed monthly. In 2025, three colonies per environment were maintained in an experimental apiary, where light, temperature, and humidity were recorded hourly from April 1 to May 1. Foraging activity was evaluated using pollen traps, while adult bee numbers and brood area were measured to assess colony growth. Environmental conditions were broadly similar across sites, except for light, which was approximately threefold higher in the open field. Colonies exposed to greater light collected more pollen and showed significantly higher increases in adult bee numbers. Brood area differences were not statistically significant but tended to be larger in the open field. Light intensity strongly influences honey bee foraging and early colony buildup. Lowlight bee houses may hinder spring recovery, highlighting the importance of designs that provide adequate illumination to sustain colony growth and productivity.
Keywords:
Bee house, Light intensity, Pollen foraging Brood development, Apiary management서 론
태양광은 대부분 생물에게 다양한 생리·행동적 과정을 유지하는 데 필수적이다 (Waiker et al., 2019). 규칙적인 낮과 밤의 교차는 동물의 예측 가능한 일주기 리듬 (circadian rhythm) 진화를 이끌었으며 (Jagannath et al., 2017), 광공해는 이러한 리듬을 교란하여 동물의 방향 감각, 짝짓기 행동, 번식 성공률에 부정적 영향을 줄 수 있다 (McDonnell et al., 2009). 최근 곤충 생태계에서 빛의 영향은 식물 - 화분매개자 네트워크의 안정성과 연결되어 있어 보전 생태학적 측면에서 더욱 중요한 이슈로 부각되고 있다 (Falcon et al., 2020; Kim et al., 2024). 꿀벌은 벌통 내부에서 대부분의 시간을 보내기 때문에, 외역봉 (foragers)으로 전환되기 전까지는 빛에 노출되는 기회가 제한적이다 (Rodriguez-Zas et al., 2012). 그러나 일단 외역봉으로 전환되면 빛은 꿀벌의 일주기 조절 (Kaiser, 1988; Moore, 2001)뿐만 아니라 외역활동 개시와 강도를 결정하는 핵심 요인으로 작용 한다. 꿀벌의 광 감각은 홑눈과 겹눈에 의해 이루어지며, 광도 측정, 편광 탐지, 색 인식 등 다양한 시각적 정보를 처리한다 (Winston, 1987). 또한, 자원 위치 정보는 태양 위치각을 이용한 8자춤 (waggle dance)을 통해 봉군 내부에 전달된다 (Frisch, 1946; Singla, 2020). 나아가 꿀벌의 출입 빈도와 조도는 양의 상관관계를 보이며, 이는 외역활동에서 태양광이 필수적임을 시사한다 (Choi, 2015; Kang and Jung, 2024).
외역활동은 우화 후 약 3주 이상의 일벌이 담당하며 (Abou-Shaara, 2014), 봉군 상태 (Huang and Robinson, 1996), 특정 유전자 발현 (Ben-Shahar et al., 2003; Whitfield et al., 2003), 여왕 상태 (Free et al., 1985), 군세 및 유충 유무 (Amdam et al., 2009; Abou-Shaara et al., 2013), 병원체 감염 (Kralj and Fuchs, 2010) 등 다양한 내부 요인에 의해 조절된다. 동시에, 자원 가용성 (Fulop and Menzel, 2000), 온도 (Southwick and Mugaas, 1971; Jung and Bae, 2022), 고도 (Mattu et al., 2012), 조도 (Choi, 2015; Lee et al., 2016; Kang and Jung, 2024) 등 외부 환경 요인도 중요한 역할을 한다. 특히 외역활동은 봉군의 생존에 필요한 자원 확보뿐 아니라, 화분매개라는 생태계 서비스 측면에서 중요하다 (Jung, 2021). 적절한 화분매개 서비스의 제공은 화분매개에 의존 작물의 생산성과 품질을 향상시키고 국내에서 그 경제적 가치는 약 6조 8,500억 원으로 추정된다 (Ghosh and Jung, 2016; Jung and Shin, 2022). 화분매개는 농업 생산의 안정성과 생물다양성 유지에도 직결된다 (Jung, 2014; Ghosh and Jung, 2016; Jung and Shin, 2022). 그러나 기후변화로 인해 꿀벌은 자원 가용성의 시·공간적 불일치를 경험하고 있으며 (Jang et al., 2022; Rahimi and Jung, 2024), 이는 봉군 영양과 건강에 위협 요인이 되고 있다. 외역봉이 채집하는 화밀과 화분은 각각 탄수화물과 단백질·지질·비타민·무기질 등 필수 영양소의 주 공급원으로, 봉군의 성장과 유지에 필수적이다 (Baker, 1977; Keller et al., 2005; Ghosh et al., 2020). 따라서 충분한 외역활동은 봉군 성장과 생존을 보장하는 핵심 요소라 할 수 있다.
이에 본 연구에서는 광환경 차이가 꿀벌 봉군의 외역활동 및 발달에 미치는 영향을 검증하고자 하였다. 꿀벌 외역활동은 적정 온도 조건에서도 조도가 부족하면 개시가 지연되므로 일정 수준 이상의 광 조건이 충족되어야 한다. 조도는 단순히 외역활동의 강도를 증가시키는 것이 아니라 외역활동의 개시 여부와 강도를 결정하는 필수 조건으로 작용한다. 따라서, 조도가 낮은 환경에서는 외역활동이 지연되어 화분 채집량이 감소하고 이는 곧 봉군 발달의 지연으로 이어질 것이라는 가설을 세우고 이를 검증하고자 하였다.
재료 및 방법
1. 시험 봉군의 배치
본 연구에 사용된 꿀벌은 양봉꿀벌 (Apis mellifera) 봉군으로, 실험은 2024년 (2월 17일~5월 27일)과 2025년 (4월 1일~5월 1일)에 수행되었다. 2024년 각기 다른 환경 (노지와 양봉사)의 봄벌 사육 결과를 기반으로 봉군 발달의 차이 원인 분석을 위해 2025년 실험이 수행되었다. 2024년의 경우, 안동시 송천동 경국대학교 실험 양봉장에서 월동을 종료한 봉군을 대상 (노지 7통, 양봉사 20통)으로 하였으며, 2025년의 경우, 3월 20일 대구광역시 군위군 군위읍 대북리에 위치한 양봉 농가에서 구매하여 안동시 송천동에 있는 경국대학교 실험 양봉장의 노지와 비닐하우스형 양봉사에 각각 3통씩 설치하였으며, 소문의 방향은 모두 남향으로 맞추고 봉군 간 간격은 최소 1 m를 두어 상호 간섭을 줄였다. 실험에 사용된 양봉사는 비닐하우스 형태로 돔 형태의 상부와 양쪽 창측 면에 모두 암막을 설치하여 차광을 필요에 따라 처리 및 제거가 가능하도록 설계하였다 (Fig. 1). 본 실험에서는 차광막의 높이를 벌통 위 20 cm를 양방향으로 개방하여 외부와 공기 순환이 가능한 상태로 진행되었다. 각 환경에 배치한 봉군의 내부 상황 (산란 유무, 봉판 수, 성충 수 등)은 최대한 유사하게 맞추어 봉군 상태에 따른 영향을 최소화하였다. 각 봉군은 먹이장 1매, 공소비 1매, 육아권 2매로 총 4매로 구성하였으며, 모든 벌통은 동일하게 EPP 재질의 10매상 규격을 사용하였다. 실험 기간 동안 관리 조건을 표준화하기 위해 주 1회 50% 자당용액 500 mL를 급이하였고, 2주 간격으로 화분떡 500 g (유채 화분 52.6%, 효모 21%, 농축발효단백 26.3%, 비타민 0.1%; 한국양봉농협)을 공급하였다.
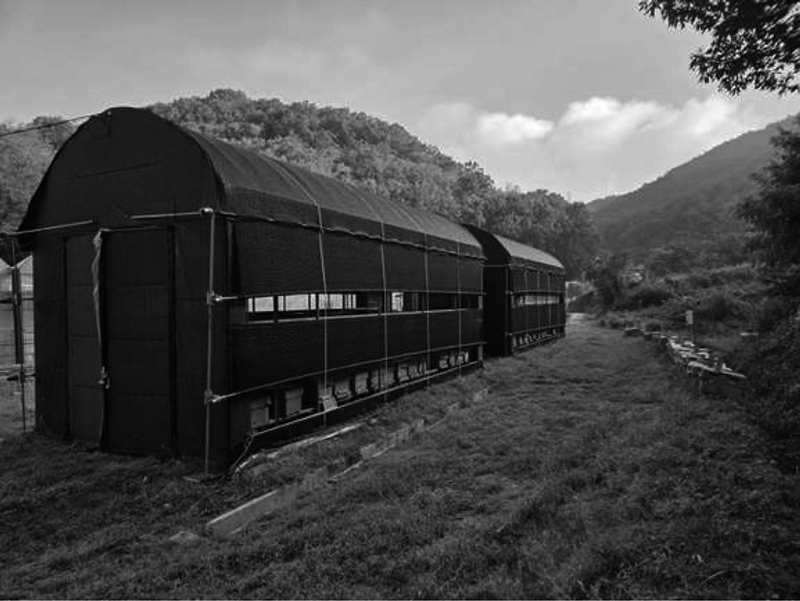
Photographs of experimental environments where honey bee colonies were placed in spring. Colonies were maintained either in an open field apiary (right) exposed to natural light or inside a shaded bee house (left) designed to reduce light intensity, enabling evaluation of the effects of light intensity on colony growth.
2. 환경 자료 조사
2024년은 봉군 외부 온도 및 상대습도를 실험 기간 동안 10분 간격으로 데이터로거 (HOBO U23 Pro v2, Onset, USA)를 이용하여 자동 기록하였다. 데이터로거는 실험 봉군들 중 중앙에 배치된 봉군 10 cm 거리에 벌통 높이에 설치하였고 -40~70℃ 범위에서 ±0.25℃, 0~100% RH 범위에서 ±2.5% RH의 정확도를 가진다. 2025년은 실험 기간 동안 1시간 간격으로 조도, 온도, 상대습도를 자동 기록하였다. 2024년 온도 및 상대습도를 분석한 결과, 봉군 외부에서 측정되는 대기의 온도 영향이 아닌 것으로 판단되어 2025년에 조도를 추가 측정하였다. 조도 센서는 중앙에 배치된 봉군 10 cm 거리에 봉군의 소문이 있는 위치와 높이가 동일하게 설치하여 태양광이 봉군에 전달되는 것과의 차이를 최소화하였다. 조도를 측정하기 위해 실리콘 포토다이오드 기반의 전천일사량 센서 PYRA300V (TrackSo, India)를 사용하였으며, 이 장비는 0~1800 W m-2 범위의 복사량을 감지하고 400~1100 nm 영역의 빛에 반응한다. 출력 신호 (0~5 V)를 수집 후 환산계수 (irradiance=360×V)를 적용해 W m-2 단위로 변환하였다. 센서는 수평계를 이용해 각도를 맞추고 벌통 높이에 설치하여 직사광선 및 반사광에 따른 오차를 최소화하였다. 온도와 상대습도는 조도 센서와 마찬가지로 실험 봉군들 중 중앙에 배치된 봉군 10 cm 거리에 벌통 높이에 설치하였고, SHT35 센서 (Sensirion AG, Stäfa, Switzerland)를 이용하여 측정하였으며, -40~125℃ 범위에서 ±0.2℃, 0~100% RH 범위에서 ±1.5% RH의 정확도를 가진다.
3. 외역활동 및 봉군 발달 평가
2024년에는 외역활동을 평가하지 않았고 2025년의 경우, 외역활동은 일일 총 화분 채집량으로 평가하였다 (Goodwin and Perry, 1992). 각 봉군의 소문에 화분 채취기 (375×250×210 mm, 야생양봉원)를 설치하여 수행하였다. 채취된 화분은 매일 회수해 -20℃에서 냉동 보관한 뒤, 정밀 저울 (AX324, Ohaus, USA; 0.1 mg 단위)로 무게를 계측하였다. 조사는 4월 한 달 동안 총 30일 중 14일을 무작위로 선정하여 매일 오전 6시부터 오후 6시까지 12시간 동안 진행하였다. 2024년의 봉군 발달은 월동 종료 시점인 2월 17일부터 채밀 시기인 5월까지 월 1회, 2025년의 봉군 발달은 4월 1일과 5월 1일에 성충 수와 봉판 면적을 측정하여 평가하였다. 봉군 발달 평가는 선행 연구 (Delaplane et al., 2013; Kang et al., 2023)에 기반하여 수행하였다. 성충 수는 “벌방 3칸=일벌 1마리” 기준으로 환산하여 추정하였고, 봉판 면적은 25 cm2 크기의 격자 32개 (가로 8×세로 4)로 구획된 조사틀로 소비 면에서 봉판이 차지하는 격자의 수를 계측하였다.
4. 자료 분석
2025년 동일 시간대에 측정한 노지와 양봉사의 조도 차이는 정규성 검정 (Shapiro-wilk test) 후 Wilcoxon 부호 순위 검정 (Wilcoxon signed rank test)으로 비교하였다. 화분량과 봉군 발달 지표는 환경 간 차이를 검증하기 위해 정규성 및 등분산성 (Levene test)을 확인한 뒤, 조건을 만족하면 독립 표본 t-검정 (Independent t-test)을, 만족하지 않을 경우 Wilcoxon 순위합 검정 (Wilcoxon rank sum test)을 적용하였다. 추가적으로, 봉군 발달 (성충 수 증가량)에 영향을 주는 주요 요인을 밝히기 위해 다중회귀 분석 (multiple regression)과 변수선택 절차 (stepwise regression, all subsets regression)를 실시하였다. 독립변수로는 환경 (노지/양봉사), 평균 조도, 평균 온도, 화분량을 포함하였으며, 모형 적합도는 결정계수 (R2), 수정 결정계수 (Adj. R2), AIC 및 BIC를 통해 비교하였다. 2024년에는 조도 및 화분 채집량을 수집하지 않았으므로, 2025년 자료에 한정하였다. 모든 통계 처리는 R (ver. 4.3.2)을 이용하였다.
결 과
1. 봉군 외부 환경 조사
2024년과 2025년의 봉군 외부 온도는 두 환경 모두에서 일주기적 변동을 보였으며, 전반적인 패턴은 유사하였다. 2024년과 2025년은 평균 기온의 변동 폭과 최고 온도의 양상에서 서로 다른 경향을 나타냈다. 반면, 공통적으로 최저 온도 및 일 최저 기온 평균은 양봉사에서 더 높게 기록되었다. 꿀벌의 저온 임계 온도인 6℃ 이하의 발생 빈도는 두 해 모두에서 노지에서 더 많았으며, 반대로 최적 활동 온도 범위인 20~25℃ 구간의 빈도는 양봉사에서 더 높은 것으로 나타났다. 반면, 조도는 두 환경 간에 뚜렷한 차이를 보였다. 노지 봉군의 평균 조도는 약 330 W로, 양봉사 봉군의 평균 조도 (약 100 W)보다 현저히 높았다. 통계 분석 결과, Wilcoxon signed-rank test에서 유의한 차이가 확인되었으며 (W=578.5, p=0.0067), 이는 노지에서의 햇빛 노출량이 양봉사에 비해 세 배 이상 높다는 점을 보여준다.
2. 외역활동 평가
4월 한 달 중 14일간 채집된 화분량을 비교한 결과, 노지 봉군의 평균 채집량은 51.6±8.28 g, 양봉사 봉군은 23.7±3.90 g으로 나타났다. 정규성 검정 (Shapiro-Wilk test) 결과 두 집단 모두 정규성을 만족하지 않았으며 (p<0.05), 등분산성 또한 확보되지 않았다 (Levene test, p=0.024). 이에 따라 Wilcoxon 순위합 검정을 실시한 결과, 두 집단 간 화분 채집량의 차이는 통계적으로 유의하였다 (W=1185.5, p<0.05). 이는 노지에 배치된 봉군이 양봉사에 비해 유의하게 많은 화분을 채집하였음을 보여준다.
3. 봉군 발달 평가
2024년 2월 17일 조사에서 노지와 양봉사 봉군의 성충 수는 각각 평균 2,544마리와 2,530마리로 거의 동일하게 나타났으며, Wilcoxon 순위합 검정 결과에서도 두 환경 간 차이는 확인되지 않았다 (W=71.5, p>0.05). 3월 14일에는 노지 봉군이 평균적으로 더 많은 성충 수를 보였으나, 통계적으로는 유의하지 않았다 (W=98.5, p>0.05). 4월 11일에도 노지 봉군의 성충 수가 다소 많았으나, 역시 뚜렷한 차이는 없었다 (W=101.5, p>0.05). 그러나 5월 17일 조사에서는 상황이 달라져, 노지 봉군의 성충 수가 평균 11,935마리로 양봉사 봉군의 8,073마리에 비해 뚜렷하게 많았으며, 독립표본 t-검정에서 그 차이가 통계적으로 유의하게 나타났다 (t=2.76, p<0.05). 2025년의 성충 수는 4월 1일 조사에서 노지 봉군과 양봉사 봉군 간에 유의한 차이가 나타나지 않았다 (t=-0.062, p>0.05). 그러나 5월 1일 조사에서는 노지 봉군의 성충 수가 평균 9,717마리로, 양봉사 봉군의 평균 5,999마리보다 유의하게 높게 나타났다 (t=2.895, p<0.05). 봉판 수는 두 조사 시점 모두에서 환경 간 차이가 뚜렷하지 않았다. 4월 1일에는 노지 봉군이 평균 10,500개, 양봉사 봉군이 평균 10,100개로 큰 차이가 없었으며 (t=0.261, p>0.05), 5월 1일에도 노지 봉군이 평균 14,633개, 양봉사 봉군이 평균 11,266개로 다소 높은 경향을 보였으나 통계적으로 유의하지 않았다 (t=1.690, p>0.05).

Mean temperature (℃±SD) of daily average, maximum and minimum during the observation outside of the honey bee colonies in the open field and bee-house during the spring of 2024 and 2025, and the frequency (n) of biologically meaningful events; ≤6℃ (lower threshold), 20~25℃ (optimum range), and ≥35℃ (upper threshold)
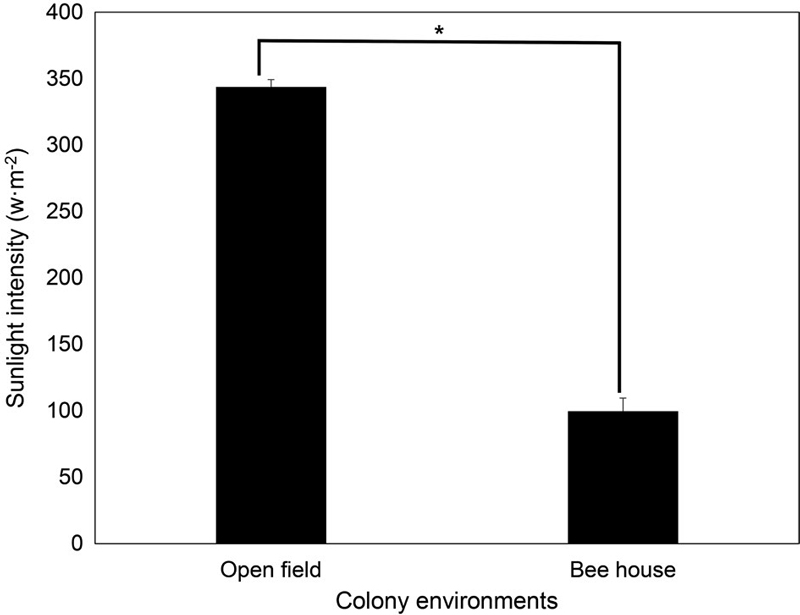
Sunlight intensity on the colonies placed in the open field and the bee house. The open-field colonies received significantly higher light intensity than those in the bee house (p<0.05).
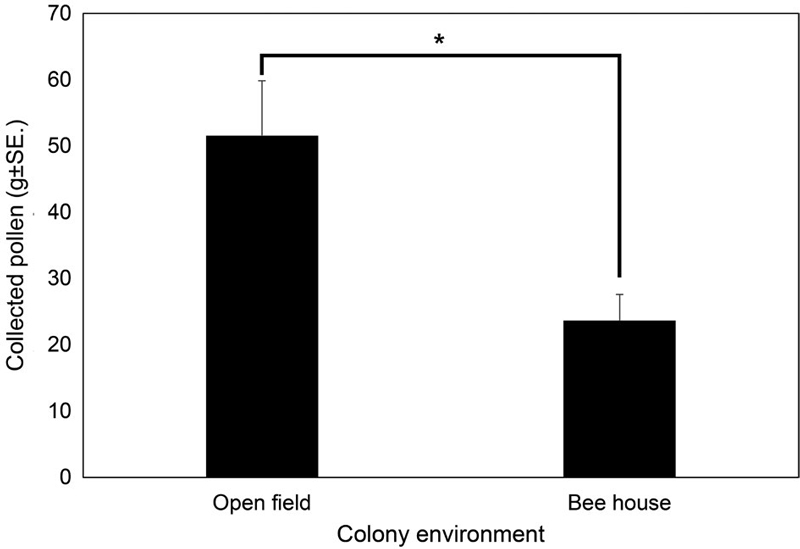
Pollen collection (g/12h/colony) by the honey bee colonies placed in the open field and bee house. Colonies in the open field collected significantly more pollen than those in the bee house (Wilcoxon rank sum test, W=1185.5, p<0.05).
4. 성충 수 발달 주요인 분석
봉군 발달 평가에서 통계적으로 유의미한 차이가 있는 성충 수 성장에 주요인을 분석하기 위해 다중회귀 분석을 수행하였다. 분산팽창 지수 (Variation Inflation Factor)를 통해 확인한 다중공선성 (Multicollinearity)의 문제는 나타나지 않았다. 다중회귀 분석 결과, 성충 수 성장에 가장 설명력이 높은 변수는 조도 단독으로 나타났다 (Adj. R2= 0.569). 화분량과 온도는 단독 혹은 조도와 결합된 모형에서도 설명력 향상에 기여하지 않았다. Stepwise 및 All subsets 회귀에서도 동일하게 조도가 유일한 주요 변수로 선택되었다.
고 찰
본 연구에서는 봄철 봉군을 대상으로 광환경의 차이가 꿀벌 활동과 성장에 어떤 영향을 주는지 보았다. 2024년의 경우, 2월부터 4월까지는 성충 수에서 환경 간 뚜렷한 차이가 없었으나, 5월 조사에서는 노지 봉군에서만 성충 수가 유의하게 증가하였다. 2025년에는 두 환경의 온도는 큰 차이를 보이지 않았지만, 조도는 노지에서 월등히 높았다. 이 차이는 곧 화분 채집량과 성충 수 증가로 이어졌다. 한 달 간의 경과 후 노지 봉군의 성충 개체 수가 뚜렷하게 많아졌다는 점이 이를 잘 보여준다. 반면 봉판 면적은 전반적으로 비슷했지만, 노지에서 약간 높은 수치를 기록했다. 성충 수 발달의 주요인은 조도로 나타났다.
노지와 양봉사의 외부 온도 조건이 큰 차이를 보이지 않았음에도 불구하고 조도의 차이가 뚜렷하게 나타났고, 이는 곧 화분 채집량과 성충 수 증가의 차이로 이어졌다. 이는 꿀벌의 외역활동이 조도와 밀접하게 관련되어 있음을 보여주는 결과로, 배 개화기에 꿀벌의 채집 활동이 온도뿐 아니라 조도의 영향을 크게 받는다고 보고한 결과와 일치한다 (Lee et al., 2016). 노지뿐만 아니라 시설에서 재배하는 망고 재배지에서는 꿀벌의 외역활동이 온도보다 조도의 변화와 더 높은 상관성을 보인 것 과도 맥락을 같이한다 (Park et al., 2014). 외역활동이 빈번하지 않은 겨울철 월동 봉군에서도 차광은 꿀벌의 이출입을 줄이는 결과와 유사하다 (Kang and Jung, 2024). 따라서, 채밀 전 꿀벌의 성장이 중요시되는 시점인 봄철에는 충분한 조도를 제공하고 꿀벌의 외역활동을 뒷받침하여 봉군의 성장을 유도해야 한다.
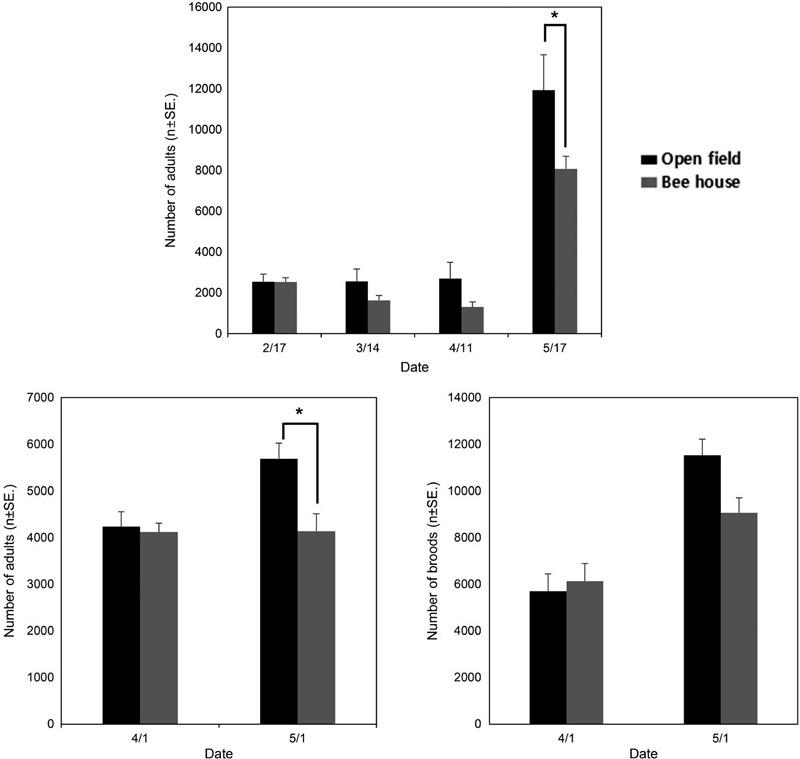
Comparison of colony growth parameters between open-field and bee-house conditions. (a) Number of adult bees recorded on February 17, March 14, April 11, and May 17, 2024. No significant differences were found on the first three sampling dates, whereas colonies maintained in the open field showed a significantly greater number of adults than those in the bee house on May 17 (p<0.05). (b) Number of adult bees on April 1 and May 1, 2025. The two environments did not differ on April 1, but colonies in the open field had significantly more adults than those in the bee house on May 1 (p<0.05). (c) Number of brood cells on April 1 and May 1, 2025. No significant differences were detected between the two environments on either date.
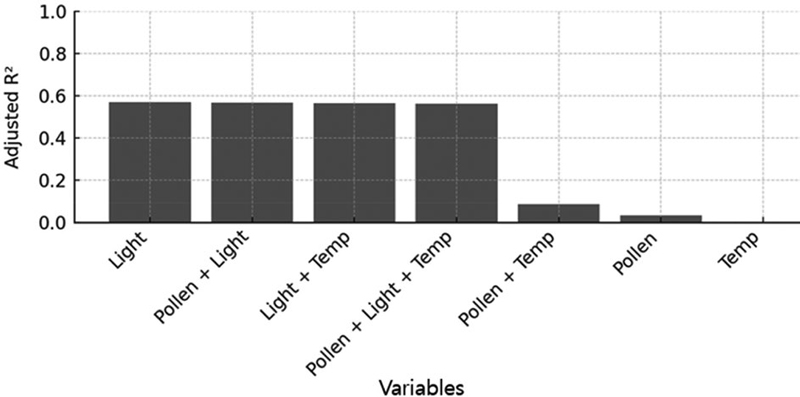
Adjusted R² from all subsets regression showing light as the primary explanatory variable, with minimal contribution from pollen and temperature.
본 연구에서는 외역활동이 낮은 양봉사의 봉군들이 외역활동이 높은 노지의 봉군들보다 성장이 지연되는 것으로 나타났다. 식량 부족 상황에서 꿀벌의 행동 발달이 달라지고, 결과적으로 봉군 성장에 제약이 생긴다는 보고가 이를 뒷받침한다 (Schulz et al., 1998). 외역활동, 봉군 내 저장 먹이 및 무게를 연속 측정하여 봉군 내 저장된 먹이가 무게 변화에 주요 요인이며 무게 증가는 외역활동 강도와 같은 것으로 나타났다 (Meikle et al., 2008). 양봉장 인근의 자원 환경이 양호한 봉군의 성장이 더 빠르게 나타나는 것 또한 외역활동에 의한 봉군 성장 속도의 차이를 의미할 수 있다 (Ricigliano et al., 2019). 화분은 단백질과 지방, 미량원소의 주요 공급원이며 화분의 단백질 함량이 선택과 선호에 영향을 주고 화분의 품질과 양에 따라 꿀벌의 수명 및 여러 분비샘의 발달이 달라진다 (Ghosh et al., 2020; Jang et al., 2022). 본 실험이 수행된 시기인 4월은 벚나무가 개화하고 도토리 화분이 채집되는 시기이다 (Pyo et al., 2020; Choi et al., 2021). 벚나무는 꿀벌의 활발한 방화 활동이 발생하고 국내 밀원식물로 수차례 언급이 되었다 (Ryu, 2003; Choi et al., 2021). 도토리 화분은 조단백 21.4%, 조지방 11.8%, 탄수화물 47.9% 등의 영양 성분을 갖는 국내 봄철 주요 화분원이다 (Lee and Ahn, 2019). 이러한 자원의 유입에 차이가 발생하여 양봉사의 봉군 성장이 상대적으로 떨어진 것으로 사료된다.
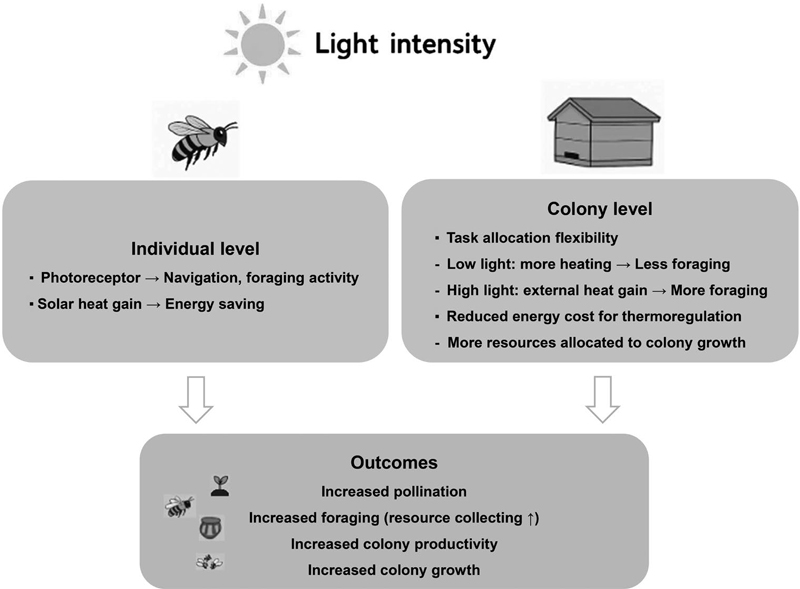
Hypothetical mechanisms by which light intensity affect honey bee colonies. Light intensity influences honey bee activity through both individual-level effects (photoreceptor-driven navigation and solar heat gain for energy saving) and colony-level effects (brood nest thermoregulation and task allocation). Sufficient external heat reduces energy costs for thermoregulation, enabling more workers to engage in foraging. As a result, resource collecting increases, which supports colony growth and overall productivity.
조도가 성충 수 성장의 주요인으로 나타난 것은, 조도가 단순히 광도만 활성시키는 것이 아니라 복사열 유입을 통해 개체 및 봉군의 에너지 소모를 감소시키는 열 조절 메커니즘으로 작용하였을 수 있다. 꿀벌은 채집할 때 흉부 온도를 일정하게 높게 유지를 하고 이는 내부적으로 열을 생산하게 되는데, 외부 기온이 30℃ 이하인 경우에는 태양 복사열을 활용하여 에너지 소비를 줄이고, 흉부 온도를 추가 상승시켜 비행근의 생산력을 향상시킨다 (Kovac et al., 2010). 투명한 폴리에틸렌 시트로 벌이 없는 빈 벌통을 덮어 햇볕의 복사열을 가두게 되면 그렇지 않은 것보다 약 12.2℃ 상승하는 것으로 보고되었다 (Wineman et al., 2003). 따라서, 봄철 조도는 외역활동을 통한 자원량도 증가하지만, 봉군 내 열량 유입이 많아져서 봉군 내부 열 조절에 사용하는 에너지가 적기 때문에 외부의 자원이 봉군 발달에 실질적으로 영향을 미칠 수 있는 것으로 사료된다.
꿀벌은 연령에 따라 노동의 분업화가 일어나지만, 봉군의 환경 및 상황에 따라 업무 전환 (task switching)이 발생한다 (Johnson, 2003). 내역봉의 2그룹 (4~8일령, 14~18일령)을 대상으로 봉군을 40℃에 노출시키면 밀랍 생산이나 유충 관리 활동에서 환기와 같은 냉각 관련 업무가 연령의 구분 없이 약 40% 증가한다고 보고하였다 (Johnson, 2003). 봉군의 산란권에 열을 가하면 외역봉의 밀위 (crop)에는 화밀이 아닌 물을 저장하고 벌방을 물 저장소로 사용한다 (Peters et al., 2019). 봉군 산란 구역의 온도를 33~35℃로 유지하는 것은 꿀벌의 중요한 적응 (Heinrich, 1993)이기 때문에 노동 분화로 이루어진 업무들보다 최우선시 된다. 본 연구가 수행된 봄철은 산란권의 온도 유지를 위해 열 생산이 필요한 시기이다. 외부 복사열이 충분히 공급되는 조건에서는 열 생산을 위해 투입해야 할 인력이 줄어들고, 그만큼 외역활동에 투입되는 일벌의 비중이 늘어날 수 있다. 따라서 본 연구에서 노지 봉군이 양봉사 봉군보다 활발한 외역활동과 뚜렷한 발달을 보인 현상은 단순히 빛 자극에 의한 출입 증가만이 아니라, 사회적 분업 구조가 조정되면서 외역 인력이 확대된 결과로 해석될 수 있다.
본 연구에서는 봄철 노지와 양봉사라는 상이한 광환경이 꿀벌 봉군의 외역활동과 발달에 미치는 영향을 비교하였다. 두 환경의 온도 조건은 큰 차이가 없었으나, 조도는 노지에서 높았고 이러한 차이는 곧 외역활동 지표인 화분 채집량과 봉군 발달 지표에 반영되었다. 이 결과는 봄철 초기 봉군 성장에 있어 광환경이 중요한 요인임을 보여주며, 빛의 부족은 외역활동 감소와 봉군 발달 저해로 이어질 수 있음을 시사한다. 따라서 양봉 관리에서 봄철 양봉사 내부에 충분한 빛을 확보하는 것은 봉군 세력 확립과 이후 채밀 준비에 있어 핵심적인 관리 요소로 고려되어야 한다. 향후 봄철뿐만 아니라 각 계절에 적절한 광 환경 조건의 구명은 양봉사의 구조와 기능 개선에 필요하다.
적 요
꿀벌의 외역활동은 산란, 먹이 저장량, 봉군 세력과 같은 내부 조건뿐만 아니라 온도, 습도, 조도와 같은 환경적 요인에 의해 조절된다. 월동이 끝난 봄철의 여왕은 산란을 재개하고 봉군의 외부 자원 수요가 급격히 증가한다. 이 시기에 외역활동은 유충 발달과 개체군 성장을 유지하는 핵심 과정이 된다. 본 연구에서는 광 환경 차이가 꿀벌의 활동과 봉군 성장에 미치는 영향을 평가하기 위해, 노지와 양봉사에 꿀벌 (Apis mellifera) 봉군을 배치하였다. 2024년에는 노지 7통과 양봉사 20통을 대상으로 봉군 외부 온도와 습도를 10분 간격으로 기록하고, 2월부터 5월까지 성충 수를 월 1회 조사하였다. 2025년에는 노지와 양봉사에 각각 3통씩 배치하여 4월 1일부터 5월 1일까지 조도·온도·습도를 매시간 기록하였으며, 화분 채집량과 성충 수·봉판 수를 조사하였다. 두 환경 간 온도의 차이는 크지 않았으나, 노지의 조도는 양봉사보다 평균적으로 약 3배 높았다. 노지에 배치된 봉군은 더 많은 화분을 채집하여 외역활동이 활발했음을 보여주었으며, 한 달 후 성충 수 증가도 유의하게 높았다. 봉판 면적은 통계적으로 뚜렷한 차이는 없었지만, 노지 봉군에서 더 큰 값을 유지하는 경향을 보였다. 이러한 결과는 조도가 봄철 초기 봉군 발달과 외역활동을 좌우하는 중요한 요인임을 시사한다. 빛이 부족한 양봉사 환경은 채집 활동을 위축시키고 봉군 성장을 억제할 수 있으므로, 봄벌 사육에는 충분한 조도가 확보되도록 구조를 조정하는 것이 필요하다. 따라서 시기에 따라 조도를 제공할 수 있도록 양봉사를 설계하는 것은 봉군의 세력 형성 및 생산성을 높이는 핵심 관리 전략이 될 수 있다.
Acknowledgments
본 연구는 농촌진흥청 농업정책지원기술개발 사업 꿀벌 강건성 연구 과제 (이상기온 대응 꿀벌 스마트 관리 기술개발, RS-2023-00232847)의 지원으로 수행되었습니다.
References
-
Abou-Shaara, H. F. 2014. The foraging behaviour of honey bees, Apis mellifera: a review. Vet. Med. 59(1): 1-10.
[https://doi.org/10.17221/7240-VETMED]

-
Abou-Shaara, H. F., A. A. Al-Ghamdi and A. A. Mohamed. 2013. Honey bee colonies performance enhance by newly modified beehives. J. Apic. Sci. 57: 45-57.
[https://doi.org/10.2478/jas-2013-0016]
-
Amdam, G. V., O. Rueppell, M. K. Fondrk, R. E. Page and C. M. Nelson. 2009. The nurse’s load: early-life exposure to broodrearing affects behavior and lifespan in honey bees (Apis mellifera). Exp. Gerontol. 44: 447-452.
[https://doi.org/10.1016/j.exger.2009.02.013]
-
Baker, H. G. 1977. Non-sugar chemical constituents of nectar. Apidologie 8(4): 349-356.
[https://doi.org/10.1051/apido:19770405]
-
Ben-Shahar, Y., H.-T. Leung, W. L. Pak, M. B. Sokolowski and G. E. Robinson. 2003. cGMP-dependent changes in phototaxis: a possible role for the foraging gene in honey bee division of labor. J. Exp. Biol. 206: 2507-2515.
[https://doi.org/10.1242/jeb.00442]
- Choi, M. 2015. Experimental studies on the frequency of the outnest activities according to the climatic changes in the Asiatic honey bee, Apis cerana, and the Western honey bee, Apis mellifera. [Master’s thesis]. Incheon National University, Incheon, Korea.
-
Choi, J. Y., K. Y. Lim, M. S. Oh and S. H. Lee. 2021. Foraging activity of honeybee and seasonal composition of major honey plants in central area of South Korea. J. Apic. 36(3): 125-139.
[https://doi.org/10.17519/apiculture.2021.09.36.3.125]
-
Delaplane, K. S., J. Van Der Steen and E. Guzman-Novoa. 2013. Standard methods for estimating strength parameters of Apis mellifera colonies. J. Apic. Res. 52(1): 1-12.
[https://doi.org/10.3896/IBRA/1.52.1.03]
-
Falcón, J., A. Torriglia, D. Attia, F. Viénot, C. Gronfier, F. Behar-Cohen, C. Martinsons and D. Hicks. 2020. Exposure to artificial light at night and the consequences for flora, fauna, and ecosystems. Front. Neurosci. 14: 602796.
[https://doi.org/10.3389/fnins.2020.602796]
-
Free, J. B., A. W. Ferguson and J. R. Simpkins. 1985. Influence of virgin queen honeybees (Apis mellifera) on queen rearing and foraging. Physiol. Entomol. 10: 271-274.
[https://doi.org/10.1111/j.1365-3032.1985.tb00047.x]
- Frisch, K. V. 1946. Die Tänze der Bienen. Österr. Zool. Z. 1: 1-148.
-
Fulop, A. and R. Menzel. 2000. Risk-indifferent foraging behaviour in honeybees. Anim. Behav. 60: 657-666.
[https://doi.org/10.1006/anbe.2000.1492]
-
Ghosh, S. and C. Jung. 2016. Global honeybee colony trend is positively related to crop yields of medium pollination dependence. J. Apic. 25(2): 85-95.
[https://doi.org/10.17519/apiculture.2016.04.31.1.85]
-
Ghosh, S., H. Jeon and C. Jung. 2020. Foraging behaviour and preference of pollen sources by honey bee (Apis mellifera) relative to protein contents. J. Ecol. Environ. 44(1): 4.
[https://doi.org/10.1186/s41610-020-0149-9]
-
Goodwin, R. M. and J. H. Perry. 1992. Use of pollen traps to investigate the foraging behaviour of honey bee colonies in kiwifruit orchards. N. Z. J Crop Hortic Sci. 20(1): 23-26.
[https://doi.org/10.1080/01140671.1992.10422322]
-
Heinrich, B. 1993. The hot-blooded insects: strategies and mechanisms of thermoregulation. Cambridge, MA: Harvard University Press.
[https://doi.org/10.4159/harvard.9780674418516]
-
Huang, Z. Y. and G. E. Robinson. 1996. Regulation of honey bee division of labor by colony age demography. Behav. Ecol. Sociobiol. 39: 147-158.
[https://doi.org/10.1007/s002650050276]
-
Jagannath, A., L. Taylor, Z. Wakaf, S. R. Vasudevan and R. G. Foster. 2017. The genetics of circadian rhythms, sleep and health. Hum. Mol. Genet. 26(R2): R128-R138.
[https://doi.org/10.1093/hmg/ddx240]
-
Jang, H., S. Ghosh, S. Sun, K. J. Cheon, S. Mohamadzade Namin and C. Jung. 2022. Chlorella-supplemented diet improves the health of honey bee (Apis mellifera). Front. Ecol. Evol. 10: 922741.
[https://doi.org/10.3389/fevo.2022.922741]
-
Johnson, B. R. 2003. Organization of work in the honeybee: a compromise between division of labour and behavioural flexibility. Proc. R. Soc. Lond. B Biol. Sci. 270(1511): 147-152.
[https://doi.org/10.1098/rspb.2002.2207]
-
Jung, C. 2014. Global attention on pollinator diversity and ecosystem service: IPBES and Honeybee. J. Apic. 29(3): 213-215.
[https://doi.org/10.17519/apiculture.2014.09.29.3.213]
- Jung, C. 2021. Integrated pollinator-pest management (IPPM) strategy as future apple IPM. [Report/venue not specified].
- Jung, C. and J. H. Shin. 2022. Evaluation of crop production increase through Insect Pollination Service in Korean Agriculture. Korean J. Appl. Entomol. 61(1): 229-238.
-
Jung, C. E. and Y. H. Bae. 2022. Production and characteristics of winter generation honey bees, Apis mellifera: Discussion with overwintering failure. [Unpublished/venue not specified].
[https://doi.org/10.17519/apiculture.2022.09.37.3.265]
-
Kaiser, W. 1988. Busy bees need rest, too: behavioural and electromyographical sleep signs in honeybees. J. Comp. Physiol. A 163(5): 565-584.
[https://doi.org/10.1007/BF00603841]
-
Kang, Y. and C. Jung. 2024. Threshold temperature for the outdoor flight activity of honey bee, Apis mellifera under overwintering conditions. J. Apic. 39(4): 317-322.
[https://doi.org/10.17519/apiculture.2024.11.39.4.317]
-
Kang, Y., T. Begna, D. H. Lee, M. J. Kim, J. H. Kim and C. Jung. 2023. Risk Assessment for Honeybees in Pesticide Spraying by Multicopter Assuming Aerial Application. J. Apic. 38(3): 233-241.
[https://doi.org/10.17519/apiculture.2023.09.38.3.233]
-
Keller, I., P. Fluri and A. Imdorf. 2005. Pollen nutrition and colony development in honey bees: part 1. Bee World 86(1): 3-10.
[https://doi.org/10.1080/0005772X.2005.11099641]
-
Kim, A. Y., A. Velazquez, B. Saavedra, B. Smarr and J. C. Nieh. 2024. Exposure to constant artificial light alters honey bee sleep rhythms and disrupts sleep. Sci. Rep. 14(1): 25865.
[https://doi.org/10.1038/s41598-024-73378-9]
-
Kovac, H., A. Stabentheiner and S. Schmaranzer. 2010. Thermoregulation of water foraging honeybees - balancing of endothermic activity with radiative heat gain and functional requirements. J. Insect Physiol. 56(12): 1834-1845.
[https://doi.org/10.1016/j.jinsphys.2010.08.002]
-
Kralj, J. and S. Fuchs. 2010. Nosema sp. influences flight behavior of infected honey bee (Apis mellifera) foragers. Apidologie 41: 21-28.
[https://doi.org/10.1051/apido/2009046]
-
Lee, G. L. and M. R. Ahn. 2019. The characteristics and analysis of nutritional compositions of bee pollen from Korea. J. Apic. 34: 73-86.
[https://doi.org/10.17519/apiculture.2019.04.34.1.73]
-
Lee, K. Y., S. H. Yim, H. J. Seo, S. Y. Kim and H. J. Yoon. 2016. Comparison of pollination activities between honeybee (Apis mellifera L.) and bumblebee (Bombus terrestris L.) during the flowering period of Asian pear (Pyrus pyrifolia N.) under variable weather conditions. J. Apic. 31(3): 247-261.
[https://doi.org/10.17519/apiculture.2016.09.31.3.247]
- Mattu, V. K., H. Raj and M. L. Thakur. 2012. Foraging behavior of honeybees on apple crop and its variation with altitude in Shimla hills of western Himalaya. Int. J. Sci. Nature 3: 296-301.
-
McDonnell, M. J., A. K. Hahs and J. H. Breuste. 2009. Ecology of cities and towns: a comparative approach. Cambridge University Press.
[https://doi.org/10.1017/CBO9780511609763]
-
Meikle, W. G., B. G. Rector, G. Mercadier and N. Holst. 2008. Within-day variation in continuous hive weight data as a measure of honey bee colony activity. Apidologie 39(6): 694-707.
[https://doi.org/10.1051/apido:2008055]
-
Moore, D. 2001. Honey bee circadian clocks: behavioral control from individual workers to whole-colony rhythms. J. Insect Physiol. 47(8): 843-857.
[https://doi.org/10.1016/S0022-1910(01)00057-9]
-
Park, I. G., H. J. Yoon, M. A. Kim, K. Y. Lee, H. C. Park and S. H. Kim. 2014. Effect on pollinating activities on mango flower by bumblebee (Bombus terrestris), honeybee (Apis mellifera) and oriental latrine fly (Chrysomyia megacephala) in green house. J. Apic. 29(4): 235-243.
[https://doi.org/10.17519/apiculture.2014.11.29.4.235]
-
Peters, J. M., O. Peleg and L. Mahadevan. 2019. Collective ventilation in honeybee nests. J. R. Soc. Interface 16(150): 20180561.
[https://doi.org/10.1098/rsif.2018.0561]
-
Pyo, S.-J., Y.-J. Lee and H.-Y. Sohn. 2020. Anti-thrombotic activities of different pollen from acorn, darea, multi-floral, pine tree and cattail. J. Apic. 35(1): 55-63.
[https://doi.org/10.17519/apiculture.2020.04.35.1.55]
-
Rahimi, E. and C. Jung. 2024. A new SDM-based approach for assessing climate change effects on plant-pollinator networks. Insects 15(11): 842.
[https://doi.org/10.3390/insects15110842]
-
Ricigliano, V. A., B. M. Mott, P. W. Maes, A. S. Floyd, W. Fitz, D. C. Copeland and K. E. Anderson. 2019. Honey bee colony performance and health are enhanced by apiary proximity to US Conservation Reserve Program (CRP) lands. Sci. Rep. 9: 4894.
[https://doi.org/10.1038/s41598-019-41281-3]
-
Rodriguez-Zas, S. L., B. R. Southey, Y. Shemesh, E. B. Rubin, M. Cohen, G. E. Robinson and G. Bloch. 2012. Microarray analysis of natural socially regulated plasticity in circadian rhythms of honey bees. J. Biol. Rhythms 27(1): 12-24.
[https://doi.org/10.1177/0748730411431404]
- Ryu, J. B. 2003. Classification of honey plants in Korea. Korean J. Apiculture 18(1): 5-22.
-
Schulz, D. J., Z. Y. Huang and G. E. Robinson. 1998. Effects of colony food shortage on behavioral development in honey bees. Behav. Ecol. Sociobiol. 42(5): 295-303.
[https://doi.org/10.1007/s002650050442]
-
Singla, A. 2020. Dancing bees speak in a code - A review. Emergent Life Sci. Res. 6: 44-53.
[https://doi.org/10.31783/elsr.2020.624453]
-
Southwick, E. E. and J. N. Mugaas. 1971. A hypothetical homeotherm: the honey bee hive. Comp. Biochem. Physiol. 40A: 935-944.
[https://doi.org/10.1016/0300-9629(71)90282-9]
-
Waiker, P., S. Baral, A. Kennedy, S. Bhatia, A. Rueppell, K. Le, E. Amiri, J. Tsuruda and O. Rueppell. 2019. Foraging and homing behavior of honey bees (Apis mellifera) during a total solar eclipse. Sci. Nat. 106(1): 4.
[https://doi.org/10.1007/s00114-018-1597-2]
-
Whitfield, C. W., A. Cziko and G. E. Robinson. 2003. Gene expression profiles in the brain predict behavior in individual honey bees. Science 302: 296-299.
[https://doi.org/10.1126/science.1086807]
- Wineman, E., Y. Lensky and Y. Mahrer. 2003. Solar heating of honey bee colonies (Apis mellifera L.) during the subtropical winter and its impact on hive temperature, worker population and honey production. Apidologie 34: 429-438.
- Winston, M. L. 1987. The Biology of the Honey Bee. Harvard University Press, Cambridge, MA.