차광형 스마트 양봉사와 노지에서 사육한 양봉꿀벌 (Apis mellifera)의 여름철 열환경 및 봉군 세력 변화 비교
Abstract
This study examined the thermal response of honey bee (Apis mellifera) queens to high-temperature conditions and compared summer thermal conditions and relative changes in colony strength between an open field and a smart bee house equipped with automated shading. Small queenright colonies were exposed to 20, 25, 30, 35, 40, or 45°C for 3 days, after which the number of eggs present in each colony was quantified. Egg counts remained relatively high at 25~35°C, declined at 40°C, and were lowest at 45°C; the mean egg count at 40°C was 27.8% lower than that at 35°C. Based on this response, 40°C was used as an operational criterion for evaluating extreme heat exposure in the field experiment. During summer 2025, mean ambient temperature and daily temperature range were lower in the shade house than in the open field (27.5 vs. 30.5°C and 16.4 vs. 21.0°C, respectively). The mean daily number of 10-min temperature records ≥40°C was also markedly lower in the shade house (0.8 vs. 23.8 records day-1). Internal hive temperatures varied with both rearing environment and colony strength, while exposure to temperatures >37°C and ≥40°C was substantially lower in the shade house. Relative adult bee abundance decreased to 83.2% in the open field but increased to 118.2% in the shade house by the final observation, whereas relative capped-brood abundance did not differ significantly between environments. These results suggest that, under the conditions of this study, automated shading was associated with reduced exposure to extreme summer heat and provided a more favorable thermal environment for maintaining adult bee populations during hot periods.
Keywords:
Automated shading, Colony strength, Heat stress, Hive temperature, Honey bee, Thermoregulation서 론
꿀벌 (Apis mellifera)은 다양한 기후대에 분포하며 화분매개를 통해 농업 생산과 생태계 기능에 기여하는 대표적인 사회성 화분매개곤충이다 (Aryal et al., 2020). 최근 기후변화에 따라 전 지구적인 평균기온 상승과 함께 극단적인 고온 현상의 빈도와 강도가 증가하고 있으며, 아시아 지역에서도 고온일과 고온 극한 현상의 증가가 지속될 것으로 전망되고 있다 (IPCC, 2021). 기온의 변화는 꿀벌의 외역활동, 봉군 성장 및 계절적 생리전환에 영향을 미치므로 꿀벌의 생활사와 봉군 관리에서 중요한 환경요인으로 작용한다 (Jung and Bae, 2022; Lee et al., 2022; Kang and Jung, 2024). 국내에서도 비정상적인 기온 변화가 꿀벌의 활동과 월동 상태에 영향을 미칠 가능성이 제시되어, 기온 자체뿐 아니라 시간적 변동성을 고려한 봉군 관리의 필요성이 제기되어 왔다 (Lee et al., 2022). 특히 여름철에는 높은 대기온도와 태양 복사열이 동시에 봉군에 전달되므로 꿀벌은 외부에서 유입되는 열과 봉군 자체의 대사열을 함께 조절해야 한다 (Kovac et al., 2010; Stabentheiner et al., 2021). 따라서 극단적인 여름철 고온이 빈번해지는 조건에서는 봉군 수준의 내부 온도 조절 능력과 그 한계를 파악하고, 이를 보조할 수 있는 사육환경 관리법을 구명할 필요가 있다.
꿀벌 봉군은 다수의 개체가 협력하여 내부 미세환경을 조절하는 초개체로서 육아에 적합한 온도를 비교적 일정하게 유지한다 (Stabentheiner et al., 2021). 일반적으로 꿀벌의 육아권은 약 34~36℃에서 안정적으로 유지되며, 국내 연구에서도 늦여름의 외부 온도가 크게 변하는 동안 봉군의 육아권 평균 온도는 약 35.2℃로 일정하게 유지되는 것으로 나타났다 (Yi and Jung, 2010; Stabentheiner et al., 2021). 이러한 온도 조절은 일벌의 열생산, 봉군 내 위치 이동, 환기, 수분 채집 및 증발냉각 등 복합적으로 작용하여 이루어진다 (Stabentheiner et al., 2021). 이러한 능동적 조절로 인해 봉군 내부의 평균 온도는 외부 환경보다 안정적으로 유지될 수 있으며, 봉군 내부 온습도의 지속적인 측정은 봉군 상태를 파악하기 위한 유용한 정보가 될 수 있다 (Kim and Jung, 2014, 2015). 그러나 봉군 내 온도 조절에는 일벌의 행동과 에너지가 요구되므로 외부 열부하가 지나치게 커지는 조건에서는 평균적인 육아권 온도가 유지되더라도 봉군이 부담하는 비용과 일중 온도 변동은 증가할 수 있다 (Stabentheiner et al., 2021; Chen et al., 2026).
실제로 꿀벌 봉군의 고온 반응은 강도와 지속시간에 따라 다르게 나타날 수 있다 (Bordier et al., 2017; Chen et al., 2026). 약 37℃의 조건에 노출된 봉군은 수분 채집을 증가시키면서 육아권의 온도를 약 35℃로 유지하여 단기간에는 뚜렷한 변화가 나타나지 않았으나 (Bordier et al., 2017), 여름철 외부 기온이 간헐적으로 40℃를 초과한 조건에서는 육아권 평균 온도가 34~36℃로 유지되었음에도 육아권 중심과 가장자리에서 적정 온도 범위를 벗어나는 시간이 반복적으로 발생하였다 (Chen et al., 2026). 또한, 봉군 외부 최고 기온과 내부 온도 변동은 봉군 개체군 감소와 관련되어, 극단적인 고온에서 봉군의 집단적인 내부 온도 조절 능력에도 한계가 발생할 수 있음이 제시되었다 (Chen et al., 2026). 국내 실내시험에서도 일벌을 지속적으로 40℃에 노출한 경우 생존기간이 크게 감소하여, 40℃ 수준의 고온이 개체 수준에서도 상당한 열스트레스로 작용할 수 있음이 확인되었다 (Lee et al., 2015). 따라서 여름철 봉군의 열환경을 평가할 때 단순한 평균 온도뿐 아니라 일최고 온도, 온도 변동폭 및 극단적인 고온에 노출되는 빈도를 함께 고려하는 것이 필요하다.
고온에 대한 봉군 수준의 반응과 함께 여왕벌의 생식능력에 미치는 영향도 여름철 봉군 유지에서 중요하게 고려되어야 한다 (McAfee et al., 2020). 여왕벌은 봉군의 산란을 담당하는 생식개체이므로 여왕의 능력 저하는 새로운 일벌의 공급과 장기적인 봉군 세력 유지에 영향을 줄 수 있다 (McAfee et al., 2020; Chapman et al., 2024). 교미한 여왕벌은 저정낭에 정자를 저장하여 장기간 이용하는데, 고온 노출로 인해 저장된 정자의 생존성이 저하되고 그로 인해 생식능력에 영향이 있을 수 있다 (McAfee et al., 2020). 저정낭에 저장된 정자는 약 15~38℃에서 상대적으로 안전하고 이보다 높은 온도는 생존성 감소 위험이 증가될 수 있다고 보고되었다 (McAfee et al., 2020). 그러나 42℃에 2시간 노출된 여왕벌에서 산란패턴과 다른 생식지표의 반응은 개체에 따라 크게 달라, 여왕벌의 열스트레스가 실제 산란능력으로 어떻게 연결되는지에 대해서는 추가적인 연구가 필요한 것으로 나타났다 (McAfee et al., 2021). 따라서 온도 단계별로 실제 산란량을 직접 측정하여 산란 감소가 나타나는 고온 범위를 구명하는 것은 봉군이 경험하는 열환경의 생물학적 위험성을 평가하기 위한 기초자료가 될 수 있다.
봉군은 대기온도뿐 아니라 벌통으로 유입되는 태양 복사열의 영향을 받을 수 있다 (Burrill and Dietz, 1981; Kovac et al., 2010). 복사열은 낮은 기온에서는 꿀벌의 체온 유지에 필요한 에너지 소비를 줄이는 방향으로 이용될 수 있지만, 높은 환경온도에서는 제거해야 할 추가적인 열부하로 작용할 수 있다 (Kovac and Stabentheiner, 2011; Kang and Jung, 2025). 이에 따라 벌통에 직접 유입되는 일사를 줄이는 차광은 여름철 과열 위험을 감소시킬 수 있는 비교적 직접적인 관리 방법으로 생각할 수 있다 (Sonter et al., 2024; Kang and Jung, 2025). 그러나 차광에 의해 열부하가 감소하더라도, 동시에 광환경이 지나치게 낮아지거나 시설 구조가 외역활동과 외부 자원의 유입을 제한할 경우 이러한 열환경 개선이 반드시 봉군 상태의 개선으로 이어진다고 단정하기 어렵다. 실제로 보호망이나 시설 내부에 배치된 봉군에서는 외부 자원 접근성이 제한되어 봉군 성장에 영향을 줄 수 있음이 보고되었다 (Sonter et al., 2024; Kang and Jung, 2025). 따라서 여름철 차광형 양봉사의 실효성을 평가하기 위해서는 외부 열환경의 변화와 함께 봉군 내부 온도 및 봉군 세력의 변화와 같은 생물학적 반응을 동시에 확인할 필요가 있다.
이러한 배경을 바탕으로 본 연구에서는 여름철 고온 환경이 양봉꿀벌 봉군의 열환경과 세력 변화에 미치는 영향을 구명하고, 차광형 스마트 양봉사를 활용한 고온기 봉군 관리의 효과와 적용 가능성을 평가하고자 하였다. 특히 고온 노출이 여왕벌의 산란과 봉군 유지에 미치는 영향을 바탕으로, 차광에 의한 열환경 개선이 봉군의 고온 스트레스를 완화하고 안정적인 봉군 유지에 기여할 수 있는지를 확인하고자 하였다. 본 연구에서는 첫째, 여왕벌의 산란이 감소하기 시작하는 고온 구간이 존재하며 이를 야외 고온 노출을 평가하기 위한 기준으로 활용할 수 있을 것으로 가정하였다. 둘째, 차광 양봉사 환경에서는 노지보다 봉군이 경험하는 평균 온도, 온도 변동 및 극단적 고온 노출이 감소할 것으로 예상하였다. 셋째, 봉군 세력이 강할수록 집단적 온도 조절에 의해 봉군 내부의 극단적 고온이 적을 것으로 예상하였다. 넷째, 차광 양봉사에 배치된 봉군은 노지 봉군보다 혹서기 동안 초기 봉군 세력을 상대적으로 안정적으로 유지할 것으로 예상하였다.
재료 및 방법
1. 여왕벌 산란 저해 온도 조사
여름철 고온이 양봉꿀벌 (A. mellifera) 여왕벌의 산란에 미치는 영향을 확인하기 위해 2025년 실내 온도 처리 실험을 수행하였다. 온도 처리구는 20, 25, 30, 35, 40 및 45℃의 6개 수준으로 설정하였다. 각 처리구에는 소비 1장, 여왕벌 1마리와 일벌 약 3,000마리로 구성된 관찰용 벌통을 사용하였으며, 온도별 5반복으로 수행하였다. 실험에 사용된 여왕벌은 2025년 6월 18일 국립경국대학교 실험양봉장에서 사육 중인 봉군을 이용하여 교미상을 편성한 후, 경북 예천군 호명읍 직산리 소재 실험포장에서 자연교미시켜 확보하였다. 교미가 완료된 교미상은 7월 5일 국립경국대학교 실험양봉장으로 이동하여 일주일간 안정화한 후 실험에 사용하였다. 각 온도 처리구에서 3일 동안 산란을 유도하였으며, 처리 종료 후 소비에 존재하는 알의 수를 계수하였다.
2. 스마트 양봉사의 구조 및 운영 시스템
본 연구에 사용된 차광형 스마트 양봉사는 경북 안동시 국립경국대학교 실험양봉장에 설치된 비닐하우스형 구조로, 돔형 상부와 양측 창면에 개폐 장치를 설치하여 외부 일사의 유입을 조절할 수 있도록 구성하였다. 여름철 시설 내부의 열 배출을 위해 출입구 측 상부에 환기팬을 설치하였다. 또한 양봉사 내부 환경을 실시간으로 측정하기 위해 온도 및 상대습도 센서 (SHT-35, Sensirion AG, Stäfa, Switzerland)와 일사량 센서 (PYRA 300V, TrackSo, New Delhi, India)를 설치하였다. 수집된 환경 자료는 IoT 기반의 잇츠스마트팜 플랫폼 (VIVANS, Seongnam, Korea)을 통해 연속적으로 저장하고 PC 및 모바일 환경에서 실시간으로 확인할 수 있도록 하였다. 상부와 양쪽 창측과 환기팬은 플랫폼과 연계하여 원격으로 제어할 수 있도록 구성하였으며, 온도와 시간 조건에 따른 자동 운용도 가능하도록 구축하였다. 본 연구의 여름철 시험에서는 차광형 스마트 양봉사의 자동 환경제어 기능을 이용하여 일사량을 조절하였다. 차광은 실험기간 동안 지속적으로 적용한 것이 아니라 설정된 시간 및 온도 조건에 따라 자동으로 조절되도록 설정하였다. 본 실험에서 설정된 자동 운용 설계는 일출 1시간 전 모든 창을 완전 개방하였다. 이후 양봉사 내부 온도센서 (SHT-35, Sensirion AG, Switzerland)에서 측정된 온도가 32℃에 도달하는 경우, 차광막을 전개하여 직사광의 유입을 감소시켰다. 환기팬은 양봉사 내부 온도가 36℃를 넘어가면 작동하도록 설정하였으며, 일몰 1시간 후에는 상부와 양측 창면의 개폐부가 완전히 폐쇄되도록 설정하였다.
3. 2025년 시험 봉군의 배치
차광 환경에 따른 여름철 봉군의 열환경과 성장 차이를 확인하기 위한 야외 실험은 2025년 7월 30일부터 8월 28일까지 경북 안동시 국립경국대학교 실험양봉장에서 수행하였다. 시험 환경은 직사광에 노출되는 노지와 차광 구조가 설치된 비닐하우스형 양봉사로 구분하였다. 봉군 세력의 상대적 변화 조사를 위해 노지에 53개 봉군, 차광 양봉사에 43개 봉군을 배치하였다. 이 중 봉군 세력에 따른 내부 열환경의 차이를 확인하기 위해 각 환경에서 빈 벌통, 3매 봉군 (5,200.8±262.9 마리) 및 5매 봉군 (7,251.7±411.1 마리)을 각각 3통씩 선정하였다. 따라서 내부 열환경 조사에는 노지 9통과 차광 양봉사 9통의 총 18통을 사용하였다. 빈 벌통은 꿀벌의 능동적인 온도 조절이 없는 조건에서 노지와 차광 양봉사 자체의 열환경 차이를 비교하기 위해 포함하였다.
4. 2025년 봉군 내·외부 열환경 및 봉군 세력 조사
노지와 차광 양봉사 환경의 열환경을 비교하기 위해 봉군 외부와 내부의 온도를 10분 간격으로 연속 측정하였다. 봉군 외부 온도는 8월 2일부터 8월 25일까지 각 환경에 데이터 로거 (HOBO U23 Pro v2, Onset Computer Corporation, Bourne, MA, USA)를 설치하여 기록하였다. 수집된 외부 온도 자료는 날짜별로 정리하여 일평균 온도와 일중 최고 및 최저 온도를 산출하였다. 외부 온도 일변동폭은 하루 중 최고 온도와 최저 온도의 차이로 산출하였으며, 여왕벌 산란 저해 온도 실험을 통해 설정한 고온 기준 이상이 기록된 횟수를 추가로 산출하였다. 봉군 내부 온도는 노지와 차광 양봉사에 배치한 빈 벌통, 3매 봉군 및 5매 봉군에서 동일하게 10분 간격으로 기록하였다. 수집된 자료는 벌통별로 정리하여 평균 내부 온도, 내부 온도 일변동폭 (최고 기온-최저 기온), 최고 내부 온도 및 여왕 산란 저해 온도 발생 횟수를 산출하였다. 또한 여름철 정상적인 육아권 온도 범위 (Winston, 1987; Jung and Bae, 2022)를 기준으로 전체 온도 기록 중 33℃ 미만과 37℃ 초과의 온도 기록이 차지하는 비율 (%)을 각각 산출하였다. 이와 별도로 여왕벌 산란 실험에서 산란 감소가 확인된 온도를 기준으로 기록된 비율을 극단적인 고온 노출 지표로 산출하였다.
봉군 세력의 시간적 변화는 성충수와 번데기수를 이용하여 평가하였다 (Delaplane et al., 2013; Kang and Jung, 2025). 조사는 2025년 8월 7일부터 8월 28일까지 1주 간격으로 총 4회 수행하였다. 성충수는 소비 표면을 덮고 있는 일벌의 비율을 기준으로 추정하였으며, 벌방 3칸을 일벌 1마리로 환산하여 소비 한쪽 면 전체를 덮은 경우 약 1,150마리로 산출하였다. 번데기수는 25 cm2 크기의 격자 32개 (가로 8×세로 4)로 구획된 조사틀을 이용하여 소비면에서 봉개가 덮인 번데기가 차지하는 격자의 수를 계측한 후, 격자 1개당 100개의 번데기수로 환산하였다. 처리구별 초기 봉군 세력의 차이를 보정하여 시간에 따른 상대적인 변화를 비교하기 위해 각 봉군의 최초 조사일인 8월 7일의 성충수와 번데기수를 각각 100으로 표준화하고, 이후 조사일의 값을 최초 조사일 대비 상대값 (%)으로 산출하였다. 따라서 본 분석은 노지와 차광 양봉사 간 절대적인 봉군 규모를 비교한 것이 아니라, 각 봉군의 최초 조사값을 기준으로 이후 성충수와 번데기수의 상대적인 변화 양상을 비교한 것이다.
5. 자료 분석
여왕벌 산란 저해 온도 실험은 온도 처리에 따른 산란수의 정규성검정 (Shapiro-Wilk test)을 통해 분포를 확인 후 일원분산분석 (one-way ANOVA)을 수행하였다. 온도 처리 간 유의한 차이가 나타난 경우 사후분석 (Tukey’s honestly significant difference test)하였다. 2025년 봉군 외부 열환경 자료는 동일 날짜에 측정된 노지와 차광 양봉사의 값을 대응시켜 분석하였다. 각 환경 간 차이 값의 정규성을 확인한 후 정규성을 만족하는 경우 (paired t-test)와 만족하지 않는 경우 (Wilcoxon signed rank test)를 구분하여 비교하였다. 봉군 내부 열환경은 환경 (노지와 차광 양봉사)과 봉군 세력 (빈 벌통, 3매 및 5매)을 요인으로 하는 이원분산분석 (two-way ANOVA)을 이용하여 평균 내부 온도, 내부 온도 일변동폭, 최고 내부 온도, 33℃ 미만 기록 비율 및 37℃ 초과 기록 비율을 각각 분석하였다. 40℃ 이상 기록 자료는 잔차 정규성을 고려하여 기록 횟수를 제곱근 변환한 후 동일한 이원분산분석을 수행하였으며, 결과는 전체 온도 기록에서 차지하는 비율 (%)로 제시하였다. 각 분석에서는 환경과 봉군 세력의 주 효과 및 환경×봉군 세력의 상호작용을 검정하였다. 2025년 성충수와 번데기수는 각 봉군의 최초 조사일 값을 100으로 표준화한 상대값을 이용하였다. 최초 조사일은 모든 봉군의 값이 100으로 동일하므로 통계 분석에서는 제외하였으며, 이후 3개 조사일의 자료를 대상으로 환경, 조사일 및 환경×조사일 상호작용을 고정 효과로 하고 봉군 번호를 임의 효과로 포함한 선형혼합모형 (linear mixed effects model)을 이용하여 분석하였다. 처리구 간 시간에 따른 변화 양상의 차이는 환경×조사일 상호작용을 기준으로 평가하였다. 모든 자료는 평균±표준오차 (SE)로 제시하였으며, 통계적 유의수준은 0.05로 설정하였다. 모든 통계 분석은 R version 4.5.3 (R Foundation for Statistical Computing, Vienna, Austria)과 RStudio 2026.01.1 Build 403을 이용하여 수행하였다.
결 과
1. 온도에 따른 여왕벌 산란수 변화
온도 조건에 따른 여왕벌의 산란수를 비교한 결과, 25~35℃에서 높은 산란수가 유지되었으며 40℃부터 감소하는 것으로 나타났다. 처리구별 평균 산란수는 20℃에서 1,960.0±92.7개, 25℃에서 2,360.0±156.8개, 30℃에서 2,480.0±131.9개, 35℃에서 2,520.0±91.7개, 40℃에서 1,820.0±131.9개, 45℃에서 1,080.0±111.4개로 나타났다 (Fig. 1). 온도 처리에 따른 산란수는 유의한 차이를 보였다 (one-way ANOVA, F=20.31, p<0.05). 사후검정 결과, 40℃ 처리구의 산란수는 25, 30 및 35℃ 처리구보다 유의하게 낮았으며 (Tukey’s HSD test, p<0.05), 45℃ 처리구는 20~40℃ 처리구보다 유의하게 낮았다 (Tukey’s HSD test, p<0.05). 특히 산란수가 가장 높았던 35℃와 비교하면 40℃에서는 약 27.8%, 45℃에서는 약 57.1% 감소하였다. 따라서 본 실험에서는 40℃부터 여왕벌 산란 감소가 확인되었으며, 이후 야외 실험에서는 40℃ 이상 발생 빈도를 고온 노출 지표로 사용하였다.
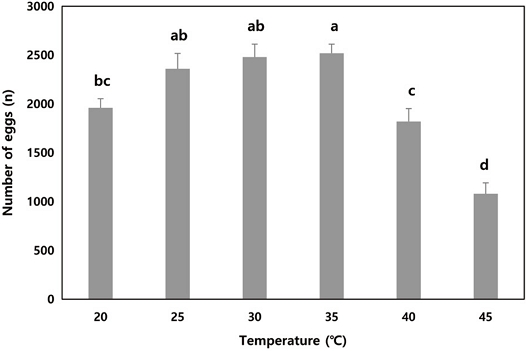
Effects of temperature on the egg laying (mean no. eggs/3 days) by Apis mellifera queens during 2025 summer season. Temperature treatment significantly affected the number of eggs (one-way ANOVA, F=20.31, p<0.05). Different letters above bars indicate significant differences among temperature treatments according to Tukey’s HSD test. Error bars represent standard error (SE).
2. 2025년 봉군 외부 열환경
2025년 8월 2일부터 8월 25일까지 노지와 차광 양봉사의 외부 열환경을 비교한 결과, 노지의 열부하가 차광 양봉사보다 높게 나타났다 (Fig. 2). 일평균 외부 온도는 노지 30.5±0.5℃, 차광 양봉사 27.5±0.4℃로 노지에서 유의하게 높았다 (Wilcoxon signed rank test, p<0.05). 외부 온도 일변동폭은 노지 21.0±0.9℃, 차광 양봉사 16.4±0.9℃로 나타나 노지에서 유의하게 크게 나타났다 (Wilcoxon signed rank test, p<0.05). 여왕벌 산란 실험에서 산란 감소가 확인된 40℃를 기준으로 고온 발생 빈도를 비교한 결과, 일평균 40℃ 이상 발생 횟수는 노지 23.8±3.6회, 차광 양봉사 0.8±0.2회로 나타났으며, 노지에서 유의하게 높았다 (Wilcoxon signed rank test, p<0.05). 따라서 차광 양봉사는 여름철 평균적인 외부 온도를 낮출 뿐 아니라 일중 온도 변화와 40℃ 이상의 극단 고온 노출을 줄이는 것으로 나타났다.
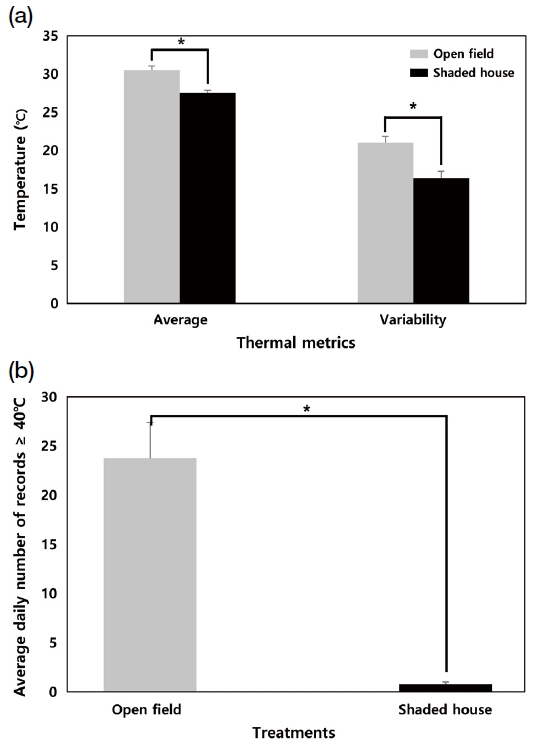
Ambient thermal conditions (mean±SE) around honey bee hives placed in the open field and shade house during summer 2025. Ambient temperature was recorded at 10-min intervals using data loggers (HOBO U23 Pro v2, Onset, USA). (a) Mean daily ambient temperature and mean daily temperature range. (b) Mean daily number of temperature records ≥40℃ per day. All thermal conditions have statistical differences between treatments (p<0.05).
3. 2025년 봉군 내부 열환경
봉군 세력에 따른 내부 열환경을 비교한 결과, 평균 내부 온도는 빈 벌통에서 노지 30.0±0.2℃, 차광 양봉사 28.1±0.2℃였으며, 3매 봉군에서는 각각 34.5±0.2℃와 34.1±0.5℃, 5매 봉군에서는 각각 34.4±0.3℃와 34.2±0.3℃로 나타났다 (Fig. 3). 평균 내부 온도는 환경 (two-way ANOVA, F=10.72, p<0.05)과 봉군 세력 (two-way ANOVA, F=188.11, p<0.05) 및 두 요인의 상호작용 (two-way ANOVA, F=4.45, p<0.05)에 의해 유의한 영향을 받았다. 내부 온도 일변동폭은 빈 벌통에서 노지 18.9±0.5℃, 차광 양봉사 12.8±0.8℃였으며, 3매 봉군에서는 각각 8.3±0.6℃와 4.0±0.7℃, 5매 봉군에서는 각각 6.7±1.0℃와 4.2±0.4℃로 나타났다. 내부 온도 일변동폭은 환경 (two-way ANOVA, F=58.78, p<0.05)과 봉군 세력 (two-way ANOVA, F=145.13, p<0.05)에 따라 유의한 차이가 있었으나, 환경과 봉군 세력의 상호작용은 유의하지 않았다 (two-way ANOVA, F=3.30, p>0.05). 최고 내부 온도는 빈 벌통에서 노지 47.9±0.4℃, 차광 양봉사 40.3±1.2℃로 나타났으며, 3매 봉군에서는 각각 44.0±1.8℃와 37.9±0.2℃, 5매 봉군에서는 각각 41.9±0.7℃와 38.2±0.2℃로 나타났다. 최고 내부 온도는 환경 (two-way ANOVA, F=54.50, p<0.05)과 봉군 세력 (two-way ANOVA, F=9.73, p<0.05)의 영향을 유의하게 받았으나, 환경과 봉군 세력의 상호작용은 유의하지 않았다 (two-way ANOVA, F=2.17, p>0.05). 따라서 봉군 세력이 증가할수록 내부 최고 온도가 낮아지는 경향을 보였으며, 동일한 봉군 세력에서는 차광 양봉사의 최고 온도가 노지보다 낮게 나타났다.
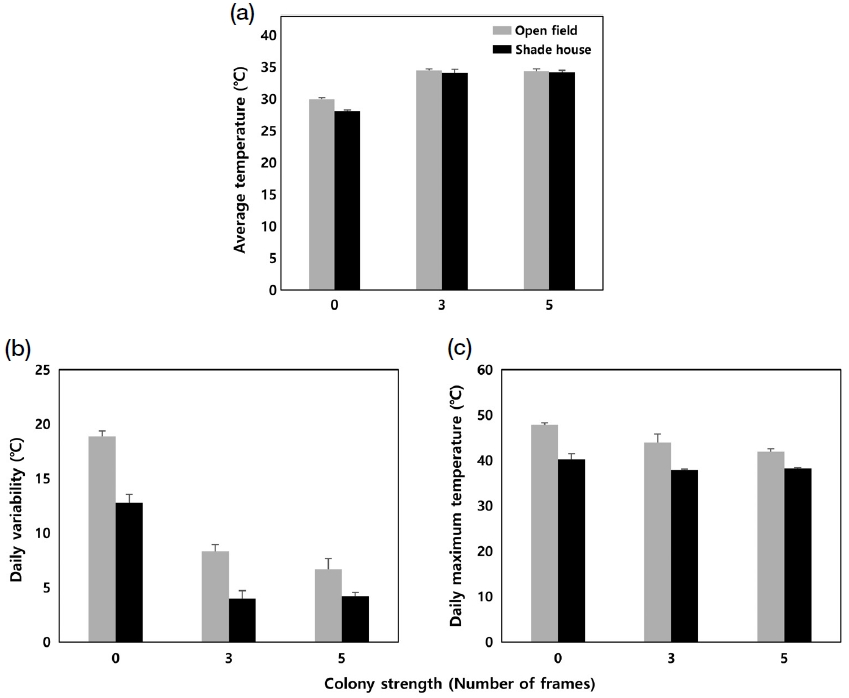
Internal thermal conditions (mean±SE) of honey bee hives with different colony strengths (0, 3, and 5 frames) placed in the open field and shade house during summer 2025. (a) Mean internal temperature. (b) Internal temperature range. (c) Maximum internal temperature. All three thermal parameters were significantly affected by environment and colony strength (two-way ANOVA, p<0.05). The environment × colony strength interaction was significant only for mean internal temperature (p<0.05).
봉군 내부 온도 자료를 이용하여 여름철 정상적인 육아권 온도 범위를 기준으로 33℃ 미만과 37℃ 초과의 온도가 기록된 비율을 산출하였으며, 여왕벌 산란 실험에서 산란 감소가 확인되기 시작한 40℃를 기준으로 40℃ 이상 고온이 기록된 비율을 추가로 분석하였다 (Fig. 4). 각 봉군의 분석기간 동안 총 3,888개의 온도 기록을 이용하였다. 33℃ 미만의 온도가 기록된 비율은 빈 벌통에서 노지 68.3±0.9%, 차광 양봉사 79.4±1.2%였으며, 3매 봉군에서는 각각 42.1±8.8%와 21.1±15.1%, 5매 봉군에서는 각각 30.7±11.6%와 26.4±9.6%로 나타났다 (Fig. 4a). 33℃ 미만 기록 비율은 봉군 세력에 따라 유의한 차이가 있었으나 (two-way ANOVA, F=14.36, p<0.05), 환경 (F=0.38, p>0.05)과 환경×봉군 세력의 상호작용 (F=1.44, p>0.05)은 유의하지 않았다. 37℃ 초과의 온도가 기록된 비율은 빈 벌통에서 노지 21.8±1.0%, 차광 양봉사 5.6±1.7%였으며, 3매 봉군에서는 각각 23.7±0.3%와 3.2±1.1%, 5매 봉군에서는 각각 17.8±3.9%와 3.5±0.8%로 나타났다 (Fig. 4b). 37℃ 초과 기록 비율은 환경의 영향을 유의하게 받았 으나 (two-way ANOVA, F=125.63, p<0.05), 봉군 세력 (F=1.67, p>0.05)과 환경×봉군 세력의 상호작용 (F=1.45, p>0.05)은 유의하지 않았다. 40℃ 이상의 온도가 기록된 비율은 빈 벌통에서 노지 14.9±1.2%, 차광 양봉사 0.6±0.4%였으며, 3매 봉군에서는 각각 5.8±2.8%와 0.0±0.0%, 5매 봉군에서는 각각 1.1±0.7%와 0.0±0.0%로 나타났다 (Fig. 4c). 제곱근 변환 후 분석한 결과, 40℃ 이상 기록 비율은 환경 (two-way ANOVA, F=73.63, p<0.05), 봉군 세력 (F=16.69, p<0.05) 및 환경×봉군 세력의 상호작용 (F=7.02, p<0.05)에 모두 유의한 영향을 받았다. 따라서 33℃ 미만의 저온 범위 이탈은 주로 봉군 세력에 따라 차이가 나타난 반면, 37℃ 초과의 고온 범위 이탈은 사육환경에 따라 뚜렷한 차이를 보였다. 특히 40℃ 이상의 극단적인 고온 노출은 차광 양봉사에서 크게 감소하였으며, 노지에서는 봉군 세력이 증가할수록 그 비율이 감소하는 양상이 나타났다.
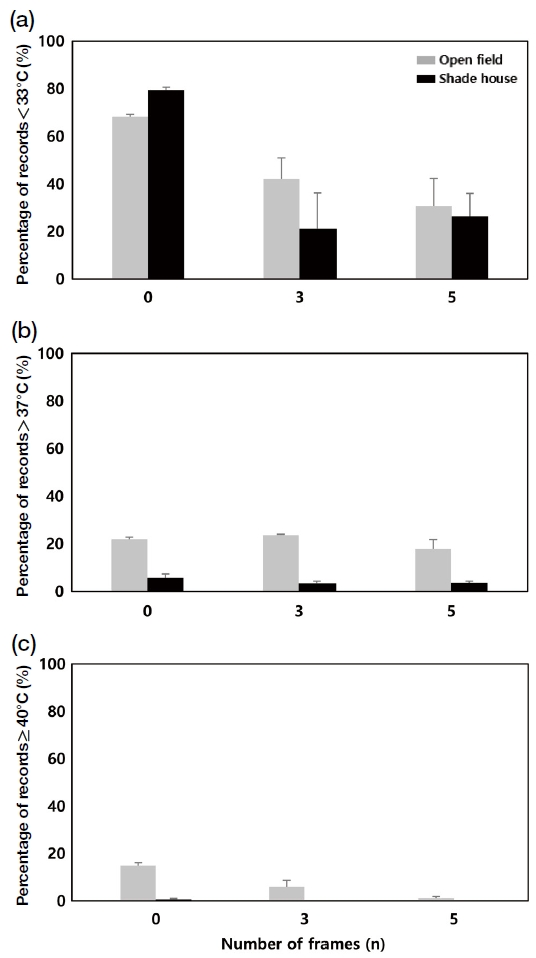
Percentage of internal temperature records (mean±SE.) below or above the temperature range in honey bee hives with different colony strengths (0, 3, and 5 frames) placed in the open field and shade house during summer 2025. (a) Records<33℃. (b) Records>37℃. (c) Records≥40℃. The proportion of records<33℃ was significantly affected by colony strength (two-way ANOVA, p<0.05), but not by environment and the environment × colony strength interaction (p>0.05). The proportion of records>37℃ was significantly affected by environment (p<0.05), but not by colony strength and their interaction (p>0.05). For records≥40℃, data were square-root transformed prior to analysis, and significant effects of environment, colony strength and their interaction (p<0.05) were detected.
4. 2025년 봉군 세력의 상대적 변화
2025년 혹서기 동안 초기 봉군 세력 대비 성충수와 번데기수의 상대적 변화를 비교하기 위해 최초 조사일의 성충수와 번데기수를 각각 100으로 표준화하였다 (Fig. 5). 성충수는 노지에서 8월 14일 87.1±2.3%, 8월 21일 85.6±3.6%, 8월 28일 83.2±5.0%로 감소한 반면, 차광 양봉사에서는 각각 101.5±0.5%, 111.2±3.8% 및 118.2±4.4%로 증가하였다 (Fig. 5a). 성충수의 환경×조사일 상호작용은 유의하였으며 (linear mixed effects model, χ2=13.50, p<0.05), 조사일별 비교에서 8월 14일, 8월 21일 및 8월 28일 모두 차광 양봉사의 상대 성충수가 노지보다 유의하게 높았다 (Holm-adjusted comparison, p<0.05). 번데기수는 노지에서 8월 14일 113.1±9.9%, 8월 21일 109.3±10.7%, 8월 28일 102.3±11.0%였으며, 차광 양봉사에서는 각각 123.2±7.8%, 108.7±9.2% 및 113.7±9.5%로 나타났다 (Fig. 5b). 번데기수에서는 환경×조사일 상호작용이 유의하지 않았으며 (χ2=1.06, p>0.05), 환경 (χ2=0.34, p>0.05)과 조사일의 효과 (χ2=2.96, p>0.05)도 유의하지 않았다. 따라서 혹서기 동안 성충수의 상대적 변화는 노지와 차광 양봉사에서 뚜렷하게 달랐으나, 번데기수의 상대적 변화에서는 환경에 따른 차이가 확인되지 않았다.
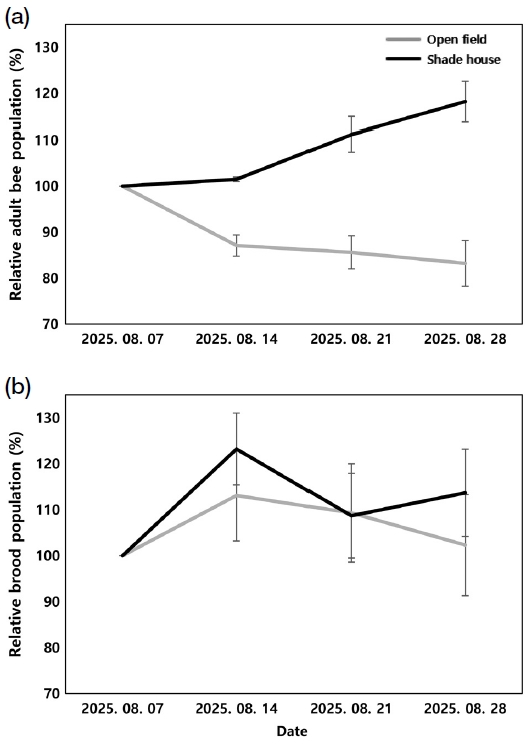
Relative changes in adult bees (a) and capped brood (b) in colonies placed in the open field and shade house during summer 2025. Values were standardized to the initial number (100%) and are presented as mean±SE. For adult bees, the environment × date interaction was significant (p<0.05), and relative adult bee numbers were significantly higher in the shade house than in the open field on August 14, 21, and 28 (Holm-adjusted comparisons, p<0.05). For brood, the environment × date interaction was not significant (p>0.05), and neither environment nor date had a significant effect (p>0.05).
고 찰
본 연구에서는 여왕벌의 산란수가 25~35℃에서 높은 수준으로 유지된 반면 40℃부터 감소하였으며, 이를 바탕으로 40℃ 이상을 야외 고온 노출을 평가하기 위한 기준으로 적용하였다. 본 실험에서는 차광 양봉사가 노지보다 외부 및 봉군 내부의 고온 노출을 감소시켰으며, 이러한 차이는 빈 벌통과 상대적으로 세력이 작은 봉군에서 크게 나타났다. 또한 혹서기가 진행되면서 노지의 성충수는 감소한 반면 차광 양봉사에서는 증가하는 서로 다른 변화 양상이 확인되었다. 따라서 차광에 따른 외부 열환경의 완화가 봉군 내부의 극단적인 고온 노출을 감소시키고, 혹서기 동안 봉군을 유지하는 데 유리한 조건을 형성한 것으로 판단된다.
본 연구에서 여왕벌의 산란수는 35℃까지 높은 수준으로 유지되다가 40℃에서 감소하였으며, 45℃에서는 그 감소폭이 더욱 크게 나타났다. 선행 연구에서는 교미 여왕벌을 40℃에 노출할 경우 저정낭에 저장된 정자의 생존이 감소하며, 실제 유통 과정에서 40℃를 초과하는 온도에 노출된 여왕벌에서도 저장 정자의 손상이 발생할 수 있음이 보고되었다 (Pettis et al., 2016). 또한 저장 정자의 생존성이 낮은 여왕벌은 정상적인 봉군에서 채집된 여왕벌보다 봉군 상태가 불량한 집단에서 더 빈번하게 확인되어, 여왕벌의 생식적 건전성과 봉군 상태가 밀접하게 관련될 가능성이 제시되었다 (Pettis et al., 2016). 다만 이러한 선행 연구는 저장 정자의 생존성을 중심으로 고온의 영향을 평가한 것으로, 본 연구에서 확인한 실제 산란수 감소와 동일한 반응을 의미하지는 않는다 (Pettis et al., 2016). 따라서 본 연구에서 확인된 40℃는 꿀벌 또는 여왕벌에 공통적으로 적용되는 절대적인 생리적 임계온도라기보다, 본 연구에서 사용한 소형 실험봉군의 3일간 온도 처리 조건에서 산란수 감소가 뚜렷하게 나타나기 시작한 고온 평가기준으로 해석하는 것이 적절하다 (Pettis et al., 2016; McAfee et al., 2021).
이러한 여왕벌 산란 결과를 봉군의 열환경과 연결하였을 때, 2025년 노지에서 관찰된 반복적인 40℃ 이상의 노출은 단순히 높은 평균 온도만으로 설명하기 어려운 열적 부담을 나타낸다. 실제 자연적인 여름 고온 조건을 조사한 연구에서 육아권의 평균 온도가 34~36℃ 범위에서 비교적 안정적으로 유지되더라도 하루 중 상당 시간 동안 적정 범위를 벗어나는 온도 변동이 발생할 수 있으며, 높은 외기 최고 온도와 큰 벌통 내부 온도 변동이 봉군 개체군 감소와 관련된다고 보고하였다 (Chen et al., 2026). 따라서 본 연구에서 차광 양봉사가 평균적인 외부 온도뿐 아니라 일교차, 최고 온도 및 40℃ 이상 발생을 감소시킨 결과는 봉군이 대응해야 하는 극단적인 열부하와 일중 변동을 동시에 줄였다는 점에서 의미가 있다.
2025년 봉군 내부의 열환경은 외부 환경뿐 아니라 봉군 세력에 따라서도 다르게 나타났다. 특히 노지의 빈 벌통에서 가장 높은 최고 온도와 40℃ 이상 발생이 나타났으며, 봉군이 존재하는 경우 이러한 고온 노출이 감소하고 봉군 세력이 커질수록 최고 온도가 낮아지는 경향을 보였다. 또한 정상 육아권 온도 범위를 기준으로 구분한 결과, 33℃ 미만의 온도 기록 비율은 주로 봉군 세력에 따라 차이가 나타난 반면, 37℃ 초과 기록 비율은 사육환경의 영향을 크게 받았다. 이는 육아권 온도 범위의 하한과 상한을 벗어나는 데 영향을 미치는 요인이 서로 다를 가능성을 보여준다. 꿀벌 봉군의 온도 항상성은 벌통 자체의 물리적인 열특성뿐 아니라 일벌의 이동, 열생산 및 냉각행동이 결합되어 형성되는 능동적·수동적 과정으로 알려져 있다 (Stabentheiner et al., 2010). 고온에 의해 육아권의 온도가 상승할 경우 봉군은 외부로부터 수분 유입을 빠르게 증가시키며, 유입된 물은 증발냉각을 통해 육아권의 과열을 완화하는 데 이용된다 (Ostwald et al., 2016). 따라서 빈 벌통과 실제 봉군 사이에서 확인된 내부 최고 온도의 차이는 일벌에 의한 능동적인 온도 조절이 기여했을 가능성이 있으며, 차광 환경에서는 외부에서 유입되는 열부하 자체가 낮아져 이러한 조절과 함께 작용했을 것으로 판단된다 (Stabentheiner et al., 2010; Ostwald et al., 2016). 다만 본 연구에서는 부채질 행동, 수분 채집량 및 증발냉각량을 직접 조사하지 않았으므로, 봉군 세력에 따른 차이를 특정 냉각행동의 증가로 설명하기보다는 집단적인 온도 조절 능력과 관련된 결과로 해석된다 (Stabentheiner et al., 2010; Ostwald et al., 2016).
이러한 열환경의 차이와 함께 초기 봉군 세력 대비 성충수의 상대적 변화 양상도 사육환경에 따라 다르게 나타났다. 성충수에서는 환경과 조사시기의 상호작용이 확인되었으며, 최초 조사일의 성충수를 100으로 표준화한 이후 노지에서는 상대 성충수가 감소한 반면 차광 양봉사에서는 증가하는 방향으로 변화하였다. 다만 성충수와 번데기수는 각 봉군의 최초 조사값을 100으로 표준화하여 분석하였으므로, 차광 양봉사의 118.2%와 노지의 83.2%는 두 환경 간 절대적인 성충수 차이를 의미하지 않는다. 이는 각 봉군의 초기 성충수 대비 시간에 따른 상대적인 변화 방향과 크기가 서로 달랐음을 의미한다. 반면 최초 조사일을 기준으로 표준화한 번데기수에서는 환경과 조사시기의 상호작용이 확인되지 않았다. 이는 혹서기 동안 차광 환경에 따른 반응이 성충 집단에서는 뚜렷하게 나타난 반면, 본 조사기간의 번데기수 변화에서는 동일한 양상으로 나타나지 않았음을 의미한다. 자연적인 폭염 환경에서 높은 최고 기온과 큰 벌통 내부 온도 변동이 봉군 개체군 감소와 연결된다는 결과는 본 연구에서 노지 봉군의 성충수가 시간이 지남에 따라 감소한 양상과도 일치한다 (Chen et al., 2026). 다만 본 연구에서는 성충의 생존기간이나 일별 출방량을 직접 조사하지 않았으므로, 노지에서 나타난 성충수 감소가 성충 사망 증가, 육아 성공률 감소 또는 다른 과정 가운데 어느 하나에 의해 발생했다고 단정할 수는 없다. 따라서 현재 결과는 차광에 따른 극단 고온의 완화가 혹서기 동안 봉군의 성충 집단을 유지하는 데 유리하게 작용하였을 가능성을 보여주는 것으로 해석하는 것이 적절하다.
최근 차광 및 비차광 봉군을 계절별로 비교한 연구에서도 고온기에는 차광 봉군의 육아량, 봉군 개체수, 외역활동 및 생산성이 비차광 봉군보다 높았던 반면, 상대적으로 서늘한 시기에는 비차광 조건이 오히려 유리하게 작용하였다 (Taha et al., 2026). 이러한 결과는 차광 자체가 봉군의 성장을 일률적으로 증가시키기보다, 외부 열부하가 높은 시기에 과열을 줄이는 방향으로 작용할 때 봉군 유지에 유리할 수 있음을 보여준다 (Taha et al., 2026). 따라서 2025년 시험에서 차광 양봉사의 성충수가 혹서기 동안 노지보다 상대적으로 안정적으로 유지된 결과는 차광을 통한 여름철 미세환경 개선이 실제 봉군 수준의 반응으로 연결될 가능성을 뒷받침한다.
본 연구의 야외 시험은 하나의 노지 환경과 하나의 차광 양봉사 환경에서 수행되어 시설 수준의 독립적인 반복이 확보되지 않았다는 한계가 있다. 따라서 두 사육환경에서 나타난 차이는 차광뿐만 아니라 시설의 구조, 환기 조건 및 장소 특성 등이 함께 반영되었을 가능성이 있으며, 본 결과를 차광만의 독립적인 효과로 일반화하는 데에는 주의가 필요하다. 또한 외부 환경 자료는 동일한 장소에서 시간에 따라 반복 측정된 자료이며, 2025년 봉군 내부 열환경 시험은 각 환경×봉군 세력 조합당 반복수가 3개로 제한되어 있어 비유의한 효과가 실제 효과의 부재를 의미한다고 단정하기 어렵다. 따라서 향후에는 독립된 다수의 차광시설과 노지 시험지를 이용한 반복시험을 수행하여 시설 및 장소 효과를 분리하고, 차광 양봉사 환경의 효과를 보다 정밀하게 검증할 필요가 있다.
차광형 양봉사의 활용은 여름철 결과만을 이용하여 연중 동일한 방향으로 일반화하기보다 계절에 따른 봉군의 요구와 함께 고려할 필요가 있다. 겨울철 차광 조건에서는 외부 온도의 변동성과 꿀벌의 이출입활동 및 먹이 소비가 감소하여 불필요한 겨울철 활동을 억제하는 효과가 확인된 바 있다 (Kang and Jung, 2024). 반면 봄철에는 노지의 높은 광환경에서 화분 채집과 성충수 증가가 차광 양봉사보다 크게 나타나, 봉군이 빠르게 성장해야 하는 시기에는 충분한 광환경을 확보하는 것이 중요하였다 (Kang and Jung, 2025). 여기에 본 연구에서 확인한 여름철 최고 온도의 감소 및 성충수 유지 효과를 함께 고려하면, 차광 양봉사의 관리목표는 계절에 따라 달라질 필요가 있다 (Kang and Jung, 2024, 2025). 따라서 차광형 스마트 양봉사는 연중 고정적인 차광시설로 사용하기보다 봄철에는 충분한 채광을 확보하고, 여름철에는 차광을 통해 열부하를 낮추며, 겨울철에는 과도한 온도 변동을 완화하는 방식으로 계절별 환경을 조절하는 시설로 활용하는 것이 적절할 것으로 판단된다 (Kang and Jung, 2024, 2025).
종합하면, 본 연구에서 40℃는 여왕벌의 산란 저하가 확인되기 시작한 본 연구 조건의 고온 평가기준으로 제시할 수 있으며, 2025년 야외 시험에서 차광 양봉사는 이러한 극단 고온에 대한 봉군의 노출을 감소시켰다. 최근 자연적인 폭염 조건에서 최고 기온과 봉군 내부 온도 변동의 증가가 봉군 개체수 감소와 연결된 결과는, 본 연구에서 차광 조건의 성충수가 혹서기 동안 상대적으로 안정적으로 유지된 결과를 뒷받침한다. 또한 계절별 차광 연구를 종합하면 차광의 효과는 모든 계절에서 동일하기보다 해당 시기에 봉군이 경험하는 주요 환경 스트레스에 따라 달라질 수 있다 (Kang and Jung, 2024, 2025; Taha et al., 2026). 따라서 차광형 스마트 양봉사는 여름철 외부 열부하와 봉군 내부의 극단적인 고온 노출을 완화하는 환경관리 수단으로 활용될 가능성이 있으며, 혹서기 동안 봉군의 성충 집단을 안정적으로 유지하는 데 기여할 수 있을 것으로 판단된다. 다만 본 연구의 야외 시험은 단일 지역과 단일 시험연도에서 수행되었으므로, 향후 독립된 다수의 차광시설과 시험지를 이용한 반복검증이 필요하다.
적 요
본 연구는 여름철 고온 환경이 양봉꿀벌 (Apis mellifera)의 여왕벌 산란과 봉군 열환경에 미치는 영향을 구명하고, 혹서기 동안 초기 봉군 세력 대비 성충수와 번데기수의 상대적 변화를 평가하고자 수행하였다. 서로 다른 온도조건에서 여왕벌의 산란 반응을 조사한 결과, 25~35℃에서 높은 산란 수준이 유지되었으나 40℃에서 감소하고 45℃에서 가장 낮게 나타났다. 야외 실험에서 차광 양봉사는 노지보다 외부 온도 변동과 극단적인 고온 발생을 완화하였으며, 봉군 내부에서도 최고 온도와 고온 노출이 낮게 나타났다. 또한 혹서기가 진행됨에 따라 노지에서는 성충수가 감소한 반면 차광 양봉사에서는 상대적으로 안정적으로 유지되거나 증가하였으나, 번데기수에서는 뚜렷한 환경 차이가 확인되지 않았다. 이상의 결과는 차광형 스마트 양봉사가 여름철 봉군이 경험하는 열부하와 극단적인 고온 노출을 완화하여 봉군 내부 열환경을 안정시키고, 혹서기 봉군의 성충 집단 유지에 유리한 환경을 제공할 가능성을 보여준다.
Acknowledgments
본 연구는 농촌진흥청 농업정책지원기술개발 사업 꿀벌 강건성 연구 과제 (이상기온 대응 꿀벌 스마트 관리 기술개발, RS-2023-00232847)의 지원으로 수행되었습니다.
References
-
Aryal, S., S. Ghosh and C. Jung. 2020. Ecosystem services of honey bees; Regulating, provisioning and cultural functions. J. Apic. 35(2): 119-128.
[https://doi.org/10.17519/apiculture.2020.06.35.2.119]

-
Bordier, C., H. Dechatre, S. Suchail, M. Peruzzi, S. Soubeyrand, M. Pioz, M. Pélissier, D. Crauser, Y. Le Conte and C. Alaux. 2017. Colony adaptive response to simulated heat waves and consequences at the individual level in honeybees (Apis mellifera). Sci. Rep. 7: 3760.
[https://doi.org/10.1038/s41598-017-03944-x]
-
Burrill, R. M. and A. Dietz. 1981. The response of honey bees to variations in solar radiation and temperature. Apidologie 12(4): 319-328.
[https://doi.org/10.1051/apido:19810402]
-
Chapman, A., A. McAfee, D. R. Tarpy, J. Fine, Z. Rempel, K. Peters, R. Currie and L. J. Foster. 2024. Common viral infections inhibit egg laying in honey bee queens and are linked to premature supersedure. Sci. Rep. 14: 17285.
[https://doi.org/10.1038/s41598-024-66286-5]
-
Chen, J., A. Fisher II, G. DeGrandi-Hoffman, C. Ozturk, B. H. Smith, J. H. Fewell, Y. Kang, K. Maxwell, K. Overcash, K. Chahal and J. F. Harrison. 2026. Negative effects of excessive heat on colony thermoregulation and population dynamics in honeybees. Ecol. Evol. Physiol. 99(1): 1-18.
[https://doi.org/10.1086/739493]
-
Delaplane, K. S., J. van der Steen and E. Guzman-Novoa. 2013. Standard methods for estimating strength parameters of Apis mellifera colonies. J. Apic. Res. 52(1): 1-12.
[https://doi.org/10.3896/IBRA/1.52.1.03]
- IPCC. 2021. Climate Change 2021: The Physical Science Basis. Contribution of Working Group I to the Sixth Assessment Report of the Intergovernmental Panel on Climate Change. Cambridge University Press, Cambridge, UK.
-
Jung, C. and Y. H. Bae. 2022. Production and characteristics of winter generation honey bees, Apis mellifera: Discussion with overwintering failure. J. Apic. 37(3): 265-274.
[https://doi.org/10.17519/apiculture.2022.09.37.3.265]
-
Kang, Y. and C. Jung. 2024. Threshold temperature for the outdoor flight activity of honey bee, Apis mellifera under overwintering conditions. J. Apic. 39(4): 317-322.
[https://doi.org/10.17519/apiculture.2024.11.39.4.317]
-
Kang, Y. and C. Jung. 2025. Analysis of light-environment factors affecting foraging activity and colony development of honey bees (Apis mellifera) in spring. J. Apic. 40(3): 225-234.
[https://doi.org/10.17519/apiculture.2025.09.40.3.225]
-
Kim, B. and C. Jung. 2014. Automatic environmental monitoring of honeybee hive: prototype design. J. Apic. 29(3): 187-192.
[https://doi.org/10.17519/apiculture.2014.09.29.3.187]
-
Kim, B. and C. Jung. 2015. Design and implementation of cloud based realtime temperature and humidity monitoring system of honey bee colony. J. Apic. 30(4): 263-267.
[https://doi.org/10.17519/apiculture.2015.11.30.4.263]
-
Kovac, H. and A. Stabentheiner. 2011. Thermoregulation of foraging honeybees on flowering plants: Seasonal variability and influence of radiative heat gain. Ecol. Entomol. 36(6): 686-699.
[https://doi.org/10.1111/j.1365-2311.2011.01313.x]
-
Kovac, H., A. Stabentheiner and S. Schmaranzer. 2010. Thermoregulation of water foraging honeybees-balancing of endothermic activity with radiative heat gain and functional requirements. J. Insect Physiol. 56(12): 1834-1845.
[https://doi.org/10.1016/j.jinsphys.2010.08.002]
-
Lee, M.-L., G.-H. Byoun, M.-Y. Lee, Y.-S. Choi and H.-K. Kim. 2015. The effect of temperature, yellow sand, and acid rain on life span and Nosema infection rate in honeybees, Apis mellifera L. J. Apic. 30(4): 269-274.
[https://doi.org/10.17519/apiculture.2015.11.30.4.269]
-
Lee, S. J., S. H. Kim, J. Lee, J. H. Kang, S. M. Lee, H. J. Park, J. Nam and C. Jung. 2022. Impact of ambient temperature variability on the overwintering failure of honeybees in South Korea. J. Apic. 37(3): 331-347.
[https://doi.org/10.17519/apiculture.2022.09.37.3.331]
-
McAfee, A., A. Chapman, H. Higo, R. Underwood, J. Milone, L. J. Foster, M. M. Guarna, D. R. Tarpy and J. S. Pettis. 2020. Vulnerability of honey bee queens to heat-induced loss of fertility. Nat. Sustain. 3: 367-376.
[https://doi.org/10.1038/s41893-020-0493-x]
-
McAfee, A., D. R. Tarpy and L. J. Foster. 2021. Queen honey bees exhibit variable resilience to temperature stress. PLoS ONE 16(8): e0255381.
[https://doi.org/10.1371/journal.pone.0255381]
-
Ostwald, M. M., M. L. Smith and T. D. Seeley. 2016. The behavioral regulation of thirst, water collection and water storage in honey bee colonies. J. Exp. Biol. 219: 2156-2165.
[https://doi.org/10.1242/jeb.139824]
-
Pettis, J. S., N. Rice, K. Joselow, D. vanEngelsdorp and V. Chaimanee. 2016. Colony failure linked to low sperm viability in honey bee (Apis mellifera) queens and an exploration of potential causative factors. PLoS ONE 11(2): e0147220.
[https://doi.org/10.1371/journal.pone.0147220]
-
Sonter, C. A., J. Jones, B. M. Dawson, J. N. Reid, K. C. B. S. Santos, S. Fuller, M. Tighe, S. C. Wilson and R. Rader. 2024. Protective covers impact honey bee colony performance and access to outside resources. Agric. Ecosyst. Environ. 368: 109028.
[https://doi.org/10.1016/j.agee.2024.109028]
-
Stabentheiner, A., H. Kovac and R. Brodschneider. 2010. Honeybee colony thermoregulation-regulatory mechanisms and contribution of individuals in dependence on age, location and thermal stress. PLoS ONE 5(1): e8967.
[https://doi.org/10.1371/journal.pone.0008967]
-
Stabentheiner, A., H. Kovac, M. Mandl and H. Käfer. 2021. Coping with the cold and fighting the heat: Thermal homeostasis of a superorganism, the honeybee colony. J. Comp. Physiol. A 207(3): 337-351.
[https://doi.org/10.1007/s00359-021-01464-8]
-
Taha, E.-K. A., S. N. Al-Kahtani, M. B. Shawer, R. Taha, S. Gaber, N. M. Elwakeil and K. Mousa. 2026. Beehive microclimate significantly influences the activity and productivity of honey bee (Apis mellifera L.) colonies. Sociobiology 73(1): e11989.
[https://doi.org/10.13102/sociobiology.v73i1.11989]
- Winston, M. L. 1987. The Biology of the Honey Bee. Harvard University Press, Cambridge, Massachusetts, USA.
- Yi, H. B. and C. Jung. 2010. Colony temperature regulation by the European honeybee (Apis mellifera L.) in late summer in temperate region. J. Apic. 25(1): 1-7.