젤라틴 캡슐 기반 실내 사육, 전용소방 (prepupal cell) 기반 실내 사육 및 봉군 내 사육 조건에서 꿀벌응애 (Varroa destructor)의 생존과 번식 비교
Abstract
Varroa destructor is a major ectoparasitic mite of the western honey bee (Apis mellifera), and understanding its reproductive biology is important for developing effective control strategies. However, existing in vitro rearing systems have limited ability to reliably induce mite reproduction. In this study, we compared the survival and reproduction of V. destructor under gelatin capsule, brood comb-based in vitro, and colony rearing conditions. Female mites were artificially introduced into gelatin capsules or newly capped brood cells and maintained under controlled in vitro conditions or within colonies. Mites and hosts maintained higher survival rates in brood combs than in gelatin capsules. No oviposition was observed in gelatin capsules, whereas reproduction was successfully induced in brood cells. Furthermore, fertility, fecundity, and presumed successful reproduction did not differ significantly between mites reared in brood combs under in vitro and colony conditions. These findings indicate that a brood comb-based in vitro system can effectively support V. destructor reproduction and may provide a useful experimental framework for studying mite reproductive biology under controlled conditions.
Keywords:
Varroa destructor, In vitro rearing, Brood comb, Reproduction, Artificial infestation서 론
꿀벌응애 (Varroa destructor)는 꿀벌속 (Apis)에 속하는 여러 종, 특히 서양종꿀벌 (Apis mellifera)과 동양종꿀벌 (Apis cerana)에 기생하는 대표적인 체외기생성 응애로, 봉개 직전의 유충부터 성충에 이르기까지 숙주의 여러 발육단계에 걸쳐 기생한다. 꿀벌응애의 생활사는 크게 봉개 직전의 유충이 있는 소방에 침입하여 번식하는 번식단계 (reproductive phase)와 꿀벌의 우화와 함께 소방 밖으로 나와 성충 꿀벌에 기생하는 배회단계 (phoretic phase)로 구분된다 (Kuenen and Calderone, 1997; Rosenkranz et al., 2010). 배회단계의 암컷 꿀벌응애는 성충 꿀벌에 기생하면서 숙주 개체 간 또는 봉군 간에 이동하며, 이후 번식을 위해 봉개 직전의 유충이 있는 소방으로 침입한다. 소방에 침입한 암컷 꿀벌응애는 숙주를 흡즙하면서 산란을 시작하여 최대 4마리의 자손을 생산하며 (Boot et al., 1992), 소방 내에서 발육을 완료한 성숙한 딸 꿀벌응애는 꿀벌의 우화와 함께 소방을 빠져나와 다음 번식단계까지 성충 꿀벌에 기생한다 (Kraus, 1993; Kuenen and Calderone, 1997).
꿀벌응애는 유충기 말부터 성충기까지 지속적으로 숙주에 기생하며 다양한 생리적 손상을 유발하기 때문에 꿀벌 봉군의 약화와 손실을 초래하는 주요 요인 중 하나로 알려져 있다. 선행 연구에 따르면, 꿀벌응애의 기생은 꿀벌의 면역체계를 저해하고 숙주의 단백질 및 탄수화물 함량을 감소시키며, 심한 경우 발육 이상 및 성충의 기형을 유발할 수 있다 (Bowen-Walker and Gunn, 2001; Navajas et al., 2008; Sipos et al., 2021; Pervez et al., 2024). 또한, 꿀벌응애의 섭식 과정에서 발생하는 상처는 다양한 병원체의 침입 경로로 작용하여 숙주의 감염 위험을 증가시킬 수 있다 (Bowen-Walker and Gunn, 2001; Kanbar and Engels, 2003). 이와 같은 꿀벌응애의 지속적인 기생과 이에 따른 생리적 손상 및 병원체 감염 위험의 증가는 개체 수준의 건강뿐만 아니라 봉군 전체의 생존에도 영향을 미칠 수 있으므로, 꿀벌응애의 효과적인 관리는 안정적인 봉군 유지에 매우 중요하다.
꿀벌응애의 지속적인 관리가 요구됨에도 불구하고, 봉군 내 꿀벌응애의 개체군 수준은 계절과 기온, 봉군의 세력 및 육아 상태 등 다양한 요인에 따라 변동할 수 있어 효과적인 관리에 어려움을 준다. Medina-Flores et al. (2024)은 약제를 처리하지 않은 봉군에서 유충과 번데기가 풍부한 9월에는 봉군 세력에 비해 꿀벌응애의 상대적 밀도가 낮았으나, 육아활동이 감소하는 12월에는 봉군 세력 대비 꿀벌응애의 상대적 밀도가 증가한다고 보고하여, 계절에 따른 봉군의 크기와 육아 상태가 꿀벌응애의 감염 수준에 영향을 미칠 수 있음을 제시하였다. 또한, 최근 연구에서는 봄 (3~5월)과 가을 (10월)의 높은 기온이 가을철 꿀벌응애 밀도 증가와 관련됨을 보고하였는데 (Smoliński et al., 2021), 이는 계절적 기온 변화 역시 꿀벌응애 개체군의 변동에 영향을 미칠 수 있음을 시사한다. 국내 양봉 현장에서도 꿀벌응애 감염은 광범위하게 확인되고 있다. Oh et al. (2025)은 2년간 6~7월에 조사한 국내 양봉농가의 90% 이상에서 꿀벌응애를 검출하였으며, Truong et al. (2023)은 6~11월 동안 조사한 국내 양봉농가의 약 80%에서 꿀벌응애가 확인되었고, 이 중 약 60%에서는 꿀벌 전체 밀도의 10%를 초과하는 높은 감염 수준이 관찰되었다. 이러한 결과는 꿀벌응애의 감염 수준이 계절적·환경적 요인에 따라 변동할 수 있으며, 동시에 국내 양봉 현장에서도 꿀벌응애 감염이 광범위하게 발생하고 있음을 보여준다.
꿀벌응애로 인한 피해를 줄이기 위해 새로운 방제 약제의 개발 (Dawdani et al., 2023; Rawn et al., 2026), 기존 약제에 대한 저항성 조사 (Kim and Lee, 2022; Dawdani et al., 2023; Lee et al., 2025), 약제 처리 방법에 따른 방제 효력 평가 (Currie and Gatien, 2006; Jack and Ellis, 2021) 등 다양한 연구가 수행되고 있다. 그러나 효과적인 방제 전략을 수립하기 위해서는 약제의 효력뿐만 아니라 꿀벌응애의 생태 및 생리적 특성에 대한 이해가 필요하다. 현재까지 꿀벌응애의 먹이 선호도 (Del Piccolo et al., 2010; Li et al., 2022), 유인물질 (Park et al., 2023), 숙주와의 상호작용 (Nazzi and Le Conte, 2016) 등에 관한 연구가 수행되어 왔으나, 생활사와 번식 및 행동을 포함한 기초 생물학적 특성을 통제된 조건에서 연구하는 데에는 여전히 어려움이 있다. 이러한 꿀벌응애의 생태 및 생리적 특성을 체계적으로 연구하기 위해서는 봉군 외부의 통제된 환경에서 꿀벌응애를 안정적으로 사육하고 관찰할 수 있는 실내 사육법의 확립이 필요하다.
지금까지 꿀벌응애의 생태와 생리를 통제된 조건에서 연구하기 위해 젤라틴 캡슐 (gelatine capsule), 페트리 디쉬 (petri dish), 특수 제작된 사육틀 등 다양한 형태의 실내 사육 시스템이 개발되었으며, 사육 중 꿀벌응애의 생존을 유지하기 위한 먹이원으로 꿀벌 번데기, 꿀벌의 혈림프 및 지방체의 혼합물, 인공적으로 조성된 먹이 등이 제안되었다 (Bruce et al., 1988; Jack et al., 2020; Posada-Florez et al., 2020). 이러한 실내 사육법은 꿀벌응애의 생존을 유지하면서 소방 내 행동 및 위치와 산란에 관여하는 요인을 규명하는 데 기여하였다 (Egekwu et al., 2018; Posada-Florez et al., 2020). 그러나 꿀벌응애의 번식을 유도한 실내 사육 연구는 주로 젤라틴 캡슐을 이용한 방법에서 보고되었으며, 이 경우에도 산란한 암컷의 비율은 약 40~60% 수준으로 제한적이었다 (Johnson et al., 2024; Zhang et al., 2024). 꿀벌응애의 산란은 소방의 물리적 환경, 숙주 및 소방에서 유래하는 화학적 신호, 암컷의 생리적 상태 등 다양한 요인의 영향을 받는 것으로 알려져 있기 때문에 (Frey et al., 2013; Johnson et al., 2024; Zhang et al., 2024) 기존의 실내 사육 환경에서는 자연 상태의 소방에서 제공되는 산란 유도 자극을 충분히 재현하지 못하여 암컷 꿀벌응애의 산란이 개시되지 않거나 산란율이 낮게 나타날 가능성이 있다.
따라서 본 연구에서는 꿀벌응애가 자연적으로 번식하는 벌집 소방을 활용하여, 봉군 외부의 통제된 실내 환경에서도 암컷 꿀벌응애의 정상적인 산란과 번식을 유도할 수 있는지를 평가하고자 하였다. 특히, 기존 실내 사육법에서 나타나는 낮은 산란율이 암컷 꿀벌응애의 번식 상태에 의해 영향을 받을 가능성을 최소화하고 사육환경 자체의 영향을 평가하기 위해, 이전 번식단계에서 산란 가능성이 확인된 번식성 암컷 꿀벌응애를 실험에 사용하였다. 이들 암컷 꿀벌응애를 꿀벌 유충과 함께 젤라틴 캡슐 또는 벌집 소방에 인위적으로 접종한 후 각 사육 조건에서 꿀벌응애의 산란 및 번식 특성을 비교하였다. 또한, 벌집 소방을 이용한 실내 사육 조건과 실제 봉군 내 사육 조건에서 꿀벌응애의 산란 및 번식 특성을 비교함으로써, 벌집 소방을 이용한 실내 사육법이 자연적인 봉군 내 번식 환경을 대체할 수 있는 실험 시스템으로 활용 가능한지를 평가하였다. 이를 통해 꿀벌응애의 번식생리 연구를 위한 벌집 소방 기반 실내 사육법의 적용 가능성을 제시하고자 하였다.
재료 및 방법
1. 젤라틴 캡슐 사육법
젤라틴 캡슐 사육에 사용할 암컷 꿀벌응애를 확보하기 위해, 봉군의 소비 위에 있는 성충 일벌에 분말설탕 (슈가파우다 3 kg, (주)꼬미다, 한국)을 처리한 후 일벌에서 떨어진 꿀벌응애를 채집하였다. 채집한 꿀벌응애는 물로 세척하여 체표에 남아 있는 분말설탕을 제거한 후, 꿀벌응애에 감염되지 않은 성충 일벌에 부착시켜 32℃로 설정된 인큐베이터 (ThermoStableTM IR-150, 대한과학, 원주시, 한국)에서 5일간 유지하였다. 이 기간 동안 꿀벌응애가 성충 일벌을 흡즙할 수 있도록 하여 기아를 방지하는 동시에 인공접종에 적합한 번식 상태에 도달하도록 하였다. 이후 꿀벌응애를 인공접종 당일 분말설탕 처리법으로 다시 회수한 후, 산란공이 팽창하여 산란 준비가 완료된 암컷 개체만을 선별하여 젤라틴 캡슐 인공접종에 사용하였다 (Fig. 1A).
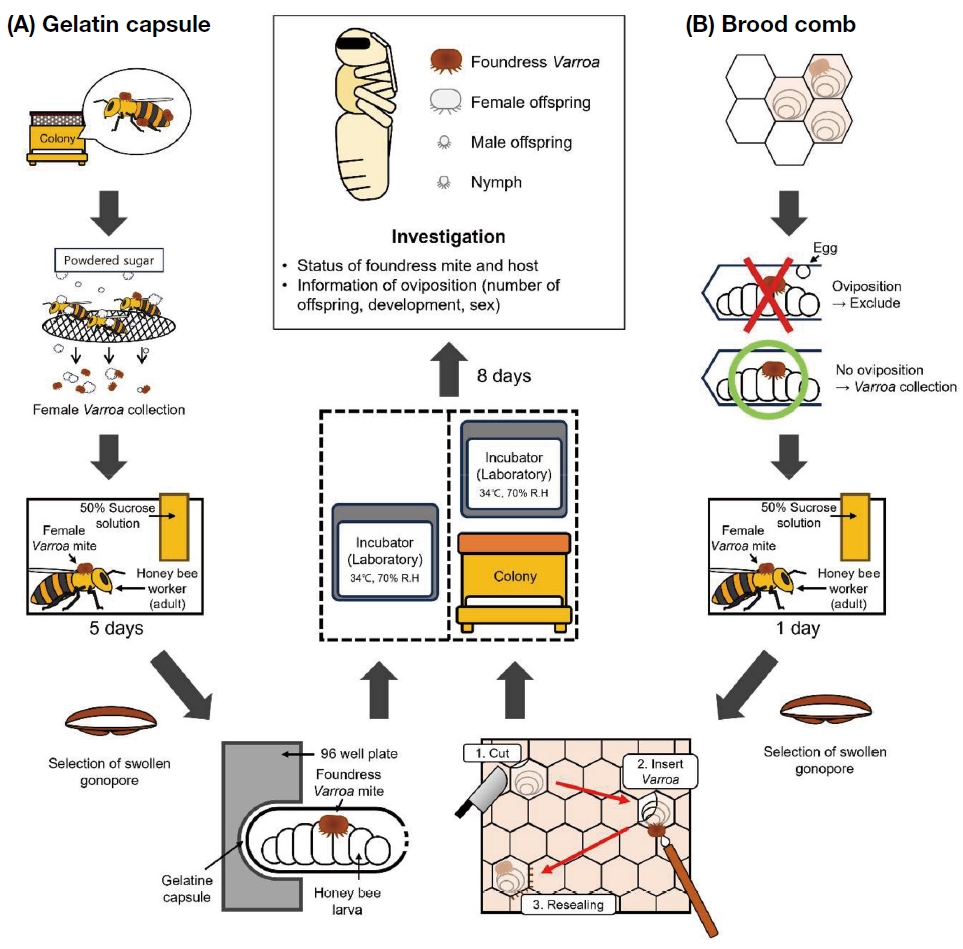
Experimental design for evaluating the reproduction of foundress Varroa destructor under different rearing conditions. Female V. destructor was collected and maintained on adult worker bees before artificial introduction. Mites with a swollen gonopore were selected and individually introduced with a honey bee host into a gelatin capsule (A) or a newly capped brood cell in a brood comb (B). Following artificial introduction, mites were maintained under in vitro conditions (34℃ and 70% R.H.) or within a honey bee colony for 8 days. The survival of the host and foundress mite and the reproductive characteristics of the mite, including offspring number, developmental stage, and sex, were subsequently evaluated.
젤라틴 캡슐을 이용한 실내 사육을 위해 0호 및 1호 젤라틴 캡슐 (HLSCIENCE, 의왕시, 한국)의 뚜껑에 해부용 핀을 이용하여 직경 약 0.5 mm의 구멍을 각각 3개씩 만들어 환기가 가능하도록 하였으며, 준비된 캡슐은 실험 직전에 UV에 30분간 노출시켜 소독한 후 인공접종에 이용하였다. 꿀벌응애의 인공접종에는 봉개된 지 24시간 이내의 일벌 소방을 이용하였다. 소방의 밀랍 뚜껑을 단면도 ((주)도루코리빙, 서울, 한국)로 조심스럽게 절개한 후, 플라스틱 이충침을 이용하여 소방 내부의 전용 (prepupa) 단계 일벌을 꺼내 준비된 젤라틴 캡슐 몸체로 옮겼다. 이충 과정에서 떨어뜨리거나 외형적으로 손상된 개체는 실험에서 제외하 였다.
각 전용단계 일벌에 1.1에서 선별한 암컷 꿀벌응애 1개체를 부착한 후 캡슐의 뚜껑을 닫아 인공접종을 완료하였다 (Fig. 1A). 본 실험은 총 116개체의 전용단계 일벌을 사용하여 3반복으로 실험을 진행하였다. 처리에 따라 꿀벌응애 접종군 (총 64개체, 반복당 10~27개체)에는 암컷 꿀벌응애 1개체를 개별 접종하였고, 비접종 대조군 (총 52개체, 반복당 10~29개체)에는 꿀벌응애를 접종하지 않았다. 준비된 젤라틴 캡슐은 96-well microplate (Greiner Bio-One, Kremsmünster, Austria)를 이용하여 움직이지 않도록 고정한 후, 34℃ 및 70% relative humidity (R.H.)로 설정된 인큐베이터 (IR-150)에서 8일 동안 사육하였다.
2. 꿀벌 전용 (prepupa) 내 접종
전용소방 (prepupal cell) 사육 실험에 사용할 암컷 꿀벌응애는 인공접종 하루 전 봉개된 일벌 소방에서 채집하였다. 전용단계의 일벌이 있는 소방을 개방하여 꿀벌응애의 감염 여부와 산란 여부를 확인한 후, 소방 내에서 아직 산란하지 않은 성숙한 암컷 꿀벌응애를 선별하여 채집하였다. 성숙한 암컷은 큐티클이 검붉은 색을 나타내는 개체를 기준으로 선별하였으며, 젤라틴 캡슐 실험과 동일하게 산란공이 팽창하여 산란 준비가 완료된 개체만을 실험에 사용하였다. 선별한 암컷 꿀벌응애는 감염되지 않은 성충 일벌에 부착시킨 후 32℃로 설정된 인큐베이터 (IR-150)에서 1일간 유지하여 인공접종 전까지 섭식할 수 있도록 하였다. 인공접종 당일 성충 일벌에 분말설탕을 처리하여 꿀벌응애를 다시 회수한 후 봉판의 일벌 전용소방에 인공접종하였다 (Fig. 1B).
전용소방을 이용한 사육법에서는 인공접종 전에 자연적으로 꿀벌응애가 침입한 소방을 외부에서 확인하여 제거하기 어렵기 때문에, 자연 감염된 꿀벌응애와 인공접종한 꿀벌응애가 동일한 소방에 존재하는 다중 감염의 가능성이 있다. 이러한 가능성을 최소화하기 위해 본 실험에서는 꿀벌응애 감염률이 10% 미만인 봉군의 봉판을 사용하였다.
산란 준비가 된 꿀벌응애를 확보하기 위해 인공접종 하루 전에 투명 필름 시트를 이용하여 봉개 직전의 5령 일벌 유충이 위치한 소방을 표시하였다. 다음날, 표시된 소방 중 새롭게 봉개된 소방만을 선별하여 인공접종에 사용하였다. 선별된 소방의 밀랍 뚜껑 가장자리를 단면도로 조심스럽게 절개하여 작은 틈을 만든 후, 2.1에서 준비한 미산란 성숙 암컷 꿀벌응애 1개체를 00호 세필붓 (화홍, 화성시, 한국)을 이용하여 소방 내부에 넣었다. 접종 후 절개 부위는 가열한 핀셋과 얇은 밀랍 조각을 이용하여 다시 봉합하였다. 인공접종한 소방의 위치는 봉판 위에 투명 필름 시트를 겹쳐 표시하여 이후 동일한 소방을 확인할 수 있도록 하였다 (Fig. 1B).
총 304개의 소방에 꿀벌응애를 인공접종하였으며 실험은 3반복으로 진행되었다. 인공접종된 소방들은 사육 환경에 따라 실내사육군 (총 130개, 반복당 36~51개)과 봉군 내 사육군 (총 174개, 반복당 55~61개)으로 구분하여 각각 다른 환경에서 8일간 유지하였다. 실내 사육군의 봉판은 성충 일벌이 없는 상태로 34℃ 및 70% R.H.로 설정된 인큐베이터 (IR-150)에서 유지하였다. 반면, 봉군 내 사육군의 봉판은 인공접종 직후 원래의 봉군으로 반환하여 성충 일벌에 의해 정상적으로 관리될 수 있도록 하였다. 봉군 내 사육 실험은 9~10월에 수행하였다.
꿀벌응애의 산란 및 자손 발육 상태를 평가하기 위해 인공접종 8일 후 표시된 소방을 개방한 후 각 소방에서 숙주의 생존 여부, 어미 꿀벌응애의 생존 여부와 개체 수, 자손의 발육단계 및 개체 수를 기록하였다.
인공접종 후 사육 환경에 따른 꿀벌응애 및 숙주의 생존률 차이를 확인하고자 인공접종 8일 후 소방을 개방하여 숙주와 꿀벌응애의 상태를 확인한 후 생존률을 다음과 같이 계산했다.
- 꿀벌응애 생존율 (Survival of foundress mite, %) = (인공접종 후 꿀벌응애가 생존한 소방 수) / (인공접종한 소방 수)×100
- 숙주 생존율 (Survival of honey bee host, %) = (인공접종 후 숙주가 생존한 소방 수) / (인공접종한 소방 수)×100
인공접종 후 꿀벌응애에 의한 소방 감염 정도를 파악하기 위해, 소방 내부의 꿀벌응애의 생존 여부 및 개체 수에 따라 감염 실패 (failed infestation), 단일 감염 (single infestation) 및 다중 감염 (multiple infestation)의 세 가지 유형으로 구분하였다. 인공접종 후 소방에서 숙주가 사망 또는 제거되거나 소방의 뚜껑이 열려있는 경우 (Host removal or death), 꿀벌응애가 사망한 경우 (Mite death), 꿀벌응애가 소방에 없는 경우 (Mite escape)에는 감염 실패로 분류하였다. 숙주와 어미 꿀벌응애가 모두 생존하고 소방 내에서 어미 꿀벌응애가 1개체만 확인된 경우에는 단일 감염으로 분류하였다. 소방 내에서 성숙한 암컷 꿀벌응애가 2개체 이상 확인된 경우에는 인공접종 이전에 자연적으로 침입한 꿀벌응애가 존재했던 것으로 판단하여 다중 감염으로 분류하였다. 각 감염 유형의 비율은 전체 인공접종 소방 수에 대한 해당 유형의 소방 수를 이용하여 다음과 같이 계산하였다.
- 감염 유형별 비율 (Proportion of infestation type, %) = (해당 감염 유형의 소방 수) / (전체 인공접종 소방 수)×100
또한 감염 실패군에서 실패 요인 비율들은 다음과 같이 계산되었다.
- 감염 실패 요인별 비율 (Proportion of failed infestation, %) = (해당 감염 실패 요인에 해당하는 소방 수) / (감염 실패한 전체 소방 수)×100
꿀벌응애의 번식 특성은 인공접종이 성공한 소방 중 어미 꿀벌응애가 1개체만 존재하는 단일 감염 소방을 대상으로 평가하였다. 다중 감염 소방은 각 자손의 모체를 구분할 수 없으므로 번식 지표 분석에서 제외하였다. 꿀벌응애의 번식 특성은 Häußermann et al. (2020)의 방법을 참고하여 산란율 (fertility), 번식력 (fecundity) 및 추정 번식 성공 (presumed successful reproduction)의 세 가지 지표로 평가하였다. 산란율은 단일 감염된 어미 꿀벌응애 중 하나 이상의 자손을 생산한 개체의 비율로 계산하였으며, 번식력은 자손을 생산한 어미 꿀벌응애당 확인된 평균 자손 수로 산출하였다. 추정 번식 성공률은 단일 감염된 어미 꿀벌응애 중 조사 시점에 번식 가능한 성숙한 딸 꿀벌응애를 생산한 개체의 비율을 기준으로 산출하였다. 각 번식 지표는 다음과 같이 계산하였다.
- 산란율 (Fertility, %) = (최소 자손 1마리를 생산한 살아있는 어미 꿀벌응애가 있는 단일 감염된 소방 수) / (단일 감염된 소방 수)×100
- 번식력 (Fecundity) = (단일 감염된 소방에서 어미 꿀벌응애 1마리당 생산한 자손 수의 합) / (단일 감염된 소방 수)
- 추정 번식 성공률 (Presumed successful reproduction, %) = (아들 및 딸 꿀벌응애 모두를 생산한 어미 꿀벌응애가 검출된 단일 감염된 소방 수 (알 단계 제외)) / (단일 감염된 소방 수)×100
3. 통계 분석
모든 통계 분석은 SPSS Statistics 27 for Windows (IBM, Armonk, NY, USA)를 이용하여 수행하였다. 인공접종 후 서로 다른 사육 조건 (젤라틴 캡슐을 이용한 실내 사육, 전용소방을 이용한 실내 사육 및 봉군 내 사육)에서 꿀벌응애의 생존율 차이는 일원분산분석 (one-way ANOVA)을 이용하여 분석하였으며, 젤라틴 캡슐과 전용소방에서 사육된 숙주의 생존율 차이는 독립표본 t-검정 (independent samples t-test)을 이용하여 분석하였다. 전용소방을 이용한 실내 사육군과 봉군 내 사육군 간 감염 유형 (감염 실패, 단일 감염 및 다중 감염)의 분포와 감염 실패 원인 (숙주 제거 또는 사망, 어미 꿀벌응애 사망 및 꿀벌응애 탈출)의 분포 차이는 카이제곱 검정 (chi-square test)을 이용하여 분석하였다. 이후 각 감염 유형 및 감염 실패 원인의 비율에 대한 두 사육환경 간 차이는 독립표본 t-검정을 이용하여 추가로 분석하였다. 또한, 두 사육환경 간 꿀벌응애의 산란 및 번식 특성을 비교하기 위해 산란율, 번식력 및 추정 번식 성공률의 차이를 독립표본 t-검정을 이용하여 분석하였다. 모든 통계 분석에서 유의수준은 0.05로 설정하였으며, p<0.05인 경우 통계적으로 유의한 차이가 있는 것으로 판단하였다.
결 과
1. 젤라틴 캡슐 및 전용소방 사육 조건에서 꿀벌응애의 생존율
꿀벌응애를 인공접종한 후 서로 다른 사육 조건에서 꿀벌응애의 생존율을 비교하였다 (Fig. 2A). 젤라틴 캡슐 실내 사육군에서 꿀벌응애의 생존율은 48.8±10.5%로, 전용소방 실내 사육군 (90.7±1.5%) 및 전용소방 봉군 내 사육군 (85.1±4.0%)보다 유의하게 낮았다 (각각 p=0.007 및 p=0.003). 반면, 전용소방 실내 사육군과 전용소방 봉군 내 사육군 간 꿀벌응애의 생존율에는 유의한 차이가 없었다 (p=0.531).
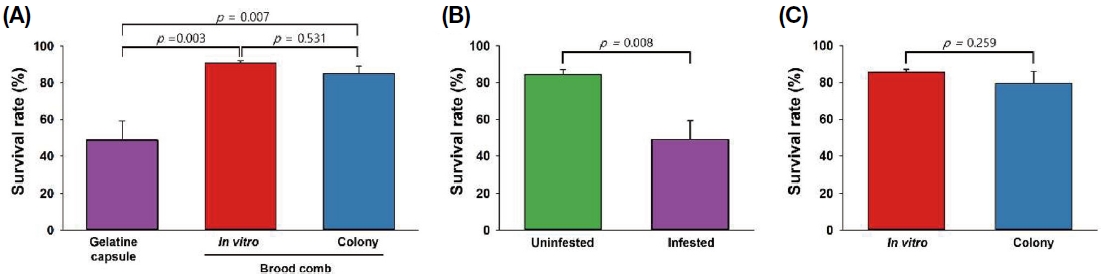
Survival of foundress Varroa destructor and honey bee hosts under different rearing conditions. (A) Survival of foundress mites maintained in gelatin capsules or brood combs under in vitro and colony conditions. (B) Survival of honey bee hosts maintained in gelatin capsules with or without V. destructor. (C) Survival of honey bee hosts maintained in brood combs under in vitro and colony conditions. Differences in mite survival were analyzed by one-way ANOVA, whereas host survival was analyzed using independent-samples t-test. Data are presented as mean±SD.
어미 꿀벌응애의 산란 여부를 조사한 결과, 젤라틴 캡슐에서 사육된 암컷 꿀벌응애에서는 산란이 관찰되지 않은 반면, 전용소방에서 사육된 암컷 꿀벌응애에서는 산란이 관찰되었다.
2. 젤라틴 캡슐 및 전용소방 사육 조건에서 숙주의 생존율
젤라틴 캡슐 사육 조건에서 꿀벌응애의 인공접종 여부에 따른 숙주 꿀벌의 생존율을 비교하였다 (Fig. 2B). 꿀벌응애를 접종하지 않은 대조군의 숙주 생존율은 84.4±2.5%였으나, 꿀벌응애를 접종한 실험군에서는 48.8±10.5%로 유의하게 낮았다 (p=0.008).
전용소방에 꿀벌응애를 인공접종한 후 실내 사육군과 봉군 내 사육군에서 숙주의 생존율을 비교한 결과 (Fig. 2C), 각각 85.51±1.70%와 79.51±6.72%로 나타났으며 두 사육 조건 간 유의한 차이는 없었다 (p=0.259).
3. 전용소방 사육 조건에 따른 꿀벌응애의 감염 유형
전용소방에 인공접종한 꿀벌응애의 감염 유형을 감염 실패, 단일 감염 및 다중 감염으로 구분하고, 실내 사육군과 봉군 내 사육군 간 분포 차이를 비교하였다 (Fig. 3). 감염 유형의 전체 분포는 두 사육 조건 간에 유의한 차이를 나타냈다 (χ2=15.145, p=0.001).
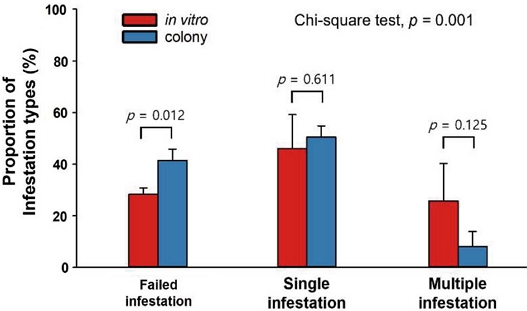
Distribution of infestation types following artificial introduction of Varroa destructor into brood cells under in vitro and colony conditions. Infestation outcomes were classified as failed infestation, single infestation, or multiple infestation according to the number and status of foundress mites and hosts in each brood cell. The overall distribution of infestation types was compared using a chi-square test, and individual infestation types were compared between rearing conditions using independent-samples t-test. Data are presented as mean±SD.
각 감염 유형의 비율을 비교한 결과, 감염 실패의 비율은 실내 사육군에서 28.3±2.5%로 봉군 내 사육군의 40.8±4.0%보다 유의하게 낮았다 (p=0.012). 단일 감염의 비율은 실내 사육군과 봉군 내 사육군에서 각각 46.0±13.1%와 50.4±4.5%로 나타났으며, 두 사육 조건 간 유의한 차이는 없었다 (p=0.611). 다중 감염의 비율은 실내 사육군에서 25.7±14.6%, 봉군 내 사육군에서 8.8±4.8%로 나타났으나, 두 사육 조건 간 차이는 통계적으로 유의하지 않았다 (p=0.125).
4. 전용소방 사육 조건에 따른 인공접종 실패 원인
감염 실패로 분류된 소방을 대상으로 실패 원인을 숙주 제거 또는 사망 (host removal or death), 어미 꿀벌응애 사망 (mite death) 및 꿀벌응애 탈출 (mite escape)로 구분하고, 실내 사육군과 봉군 내 사육군 간 분포를 비교하였다 (Fig. 4). 인공접종 실패 원인의 전체 분포는 두 사육 조건 간에 유의한 차이가 없었다 (χ2=0.235, p=0.889).
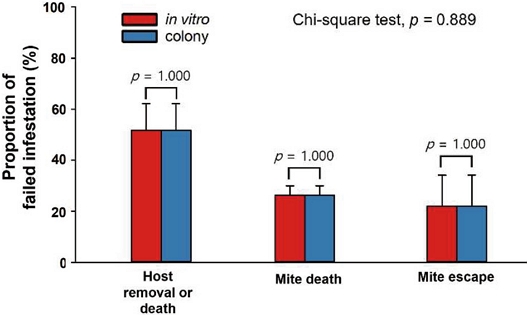
Distribution of factors associated with failed Varroa destructor infestation under in vitro and colony rearing conditions. Failed infestations were categorized as host removal or death, mite death, or mite escape. The overall distribution of failure factors was compared using a chi-square test, and individual factors were compared between rearing conditions using independent-samples t-test. Data are presented as mean±SD.
두 사육 조건 모두에서 숙주 제거 또는 사망이 가장 높은 비율을 차지하였으며, 실내 사육군과 봉군 내 사육군에서 각각 51.7±10.4%와 51.2±19.6%로 나타났다. 어미 꿀벌응애 사망의 비율은 각각 26.3±3.7%와 24.7±11.6%였으며, 꿀벌응애 탈출의 비율은 각각 22.0±12.2%와 24.1±21.6%였다. 각 실패 원인의 비율을 두 사육 조건 간에 비교한 결과, 모든 항목에서 유의한 차이가 나타나지 않았다 (p>0.05).
5. 전용소방 사육 조건에 따른 꿀벌응애의 번식 지표 (Reproductive parameter)
전용소방을 이용한 실내 사육군과 봉군 내 사육군에서 꿀벌응애의 번식 특성을 비교하기 위해 Häußermann et al. (2020)의 방법에 따라 산란율, 번식력 및 추정 번식 성공률을 평가하였다 (Fig. 5).
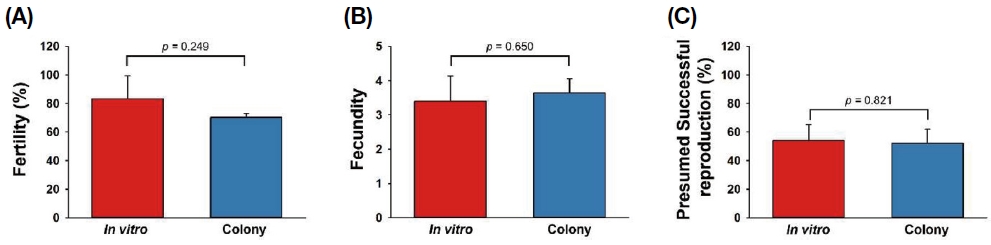
Reproductive parameters of Varroa destructor maintained in brood combs under in vitro and colony conditions. (A) Fertility, (B) fecundity, and (C) presumed successful reproduction. Differences between the two rearing conditions were analyzed using independent-samples t-test. Data are presented as mean±SD.
단일 감염 소방에서 생존한 어미 꿀벌응애의 산란 여부를 조사한 결과, 실내 사육군에서는 83.2±16.2%, 봉군 내 사육군에서는 70.3±2.7%의 어미 꿀벌응애가 하나 이상의 자손을 생산하였다 (Fig. 5A). 산란율은 두 사육 조건 간에 유의한 차이가 없었다 (p=0.249).
어미 꿀벌응애당 생산된 자손 수는 실내 사육군에서 3.4±0.7개체, 봉군 내 사육군에서 3.6±0.4개체로 나타났으며, 두 사육 조건 간 유의한 차이는 없었다 (p=0.650; Fig. 5B).
수컷과 암컷 자손을 모두 생산한 어미 꿀벌응애의 비율을 기준으로 추정 번식 성공률을 평가한 결과, 실내 사육군과 봉군 내 사육군에서 각각 54.0±11.2%와 50.9±10.8%로 나타났으며, 두 사육 조건 간 유의한 차이는 없었다 (p=0.821; Fig. 5C).
고 찰
꿀벌응애의 번식과 산란에 대한 이해는 꿀벌응애의 생태를 규명하고 효과적인 방제 전략을 개발하기 위한 중요한 기초자료가 될 수 있다. Frey et al. (2013)은 숙주의 발육단계와 봉개 직후 소방 내 환경이 꿀벌응애의 생식 활성화와 산란 개시에 중요한 영향을 미친다고 보고하였으며, 이를 통해 꿀벌응애의 산란 시기와 번식 조건에 대한 정보를 제시하였다. 또한, Fuchs (1990)는 번식성 꿀벌응애가 일벌 소방보다 수벌 소방을 선호한다는 특성을 제시하였으며, 이러한 생태적 특성은 수벌방 제거를 이용한 물리적 방제법의 생물학적 근거가 되었다. 이처럼 꿀벌응애의 번식생태에 관한 연구는 방제 전략 개발에도 활용될 수 있으나, 기존의 많은 연구는 환경 조건을 정밀하게 통제하기 어려운 봉군 내에서 수행되어 왔다. 봉군 내에서는 외부 온·습도 변화뿐만 아니라 일벌의 소방 관리 및 위생활동 등이 꿀벌응애의 행동과 번식에 영향을 줄 수 있기 때문에 특정 요인의 영향을 독립적으로 평가하기 어렵다. 반면 실내 사육법은 온도와 습도 등의 환경 조건을 일정하게 유지하면서 꿀벌응애를 관찰할 수 있다는 장점이 있다. 그러나 기존 실내 사육법에서 꿀벌응애의 산란이 성공적으로 유도된 사례는 제한적이며, 자연적인 봉군 내 환경에 비해 상대적으로 낮은 산란율이 보고되었다 (Johnson et al., 2024; Zhang et al., 2024).
본 연구에서는 선행 연구 (Johnson et al., 2024; Zhang et al., 2024)와 달리 젤라틴 캡슐에서 사육된 암컷 꿀벌응애에서 산란이 관찰되지 않았다. 이러한 차이는 실험에 사용된 꿀벌응애의 생리적 상태와 사육환경의 차이가 모두 영향을 미쳤을 가능성이 있다. 암컷 꿀벌응애는 교미 후 번식을 위해 일정한 생리적 성숙 기간이 필요하며 (Häußermann et al., 2016), 산란공 (gonopore)의 형태는 번식 상태를 반영하는 형태적 지표로 이용될 수 있다 (Zheng et al., 2023; Zhang et al., 2024). 이에 본 연구에서는 젤라틴 캡슐 실험에 사용한 암컷 꿀벌응애를 성충 일벌에서 일정 기간 유지한 후 산란공이 팽창한 개체만을 선별하여 인공접종함으로써, 번식 성숙도가 낮은 개체가 실험에 포함될 가능성을 최소화하고자 하였다. 전용소방 실험에서도 마찬가지로 갓 봉개된 소방에서 아직 산란하지 않은 성숙 암컷 중 산란공이 팽창한 개체만을 선별하여 사용하였다. 그러나 두 실험군에서 사용한 꿀벌응애는 출처와 이전 숙주 경험이 서로 달랐기 때문에, 이들의 생리적 상태가 완전히 동일하였다고 단정하기는 어렵다. 젤라틴 캡슐군의 꿀벌응애는 성충 일벌에서 채집된 배회단계 개체인 반면, 전용소방군의 꿀벌응애는 이미 봉개된 소방에 침입하여 숙주를 섭식한 번식단계 개체였으므로, 전용소방군의 꿀벌응애는 인공접종 이전에 숙주 또는 소방에서 유래하는 번식 관련 자극에 이미 노출되었을 가능성이 있다. 따라서 본 연구에서 관찰된 젤라틴 캡슐군과 전용소방군 간 산란 차이를 사육용기의 물리적 특성만으로 설명하기에는 한계가 있다. 그럼에도 불구하고 기존 연구에서는 배회단계 또는 번식단계 등 꿀벌응애의 이전 행동단계와 관계없이 젤라틴 캡슐 내에서 일정 수준의 산란이 유도될 수 있음이 보고되었다 (Piou et al., 2016; Johnson et al., 2024). 또한 본 연구에서는 두 사육법 모두 유사한 발육단계의 꿀벌 숙주를 이용하였고, 번식 상태를 나타내는 산란공 팽창을 공통적인 선별 기준으로 적용하였다. 이를 고려하면, 본 연구에서 젤라틴 캡슐군에서 산란이 전혀 나타나지 않은 것은 꿀벌응애의 이전 생리적 이력뿐만 아니라 선행 연구와 달랐던 캡슐의 종류, 내부 공간 및 환기 조건 등 사육환경의 물리적·화학적 차이도 함께 영향을 미쳤을 가능성이 있다. 특히 자연 소방에서 제공되는 물리적 구조와 화학적 환경이 복합적으로 작용하여 꿀벌응애의 산란을 유도한다는 기존 연구 (Frey et al., 2013; Zhang et al., 2024)를 고려할 때, 젤라틴 캡슐 환경이 이러한 자극을 충분히 재현하지 못했을 가능성을 배제할 수 없다.
꿀벌응애의 산란은 단일 요인보다는 숙주의 발육단계, 소방 침입 시기, 사육 공간 및 숙주에서 유래하는 화학적 신호 등 여러 요인의 복합적인 영향을 받는 것으로 알려져 있다. Johnson et al. (2024)과 Frey et al. (2013)은 숙주의 발육단계가 꿀벌응애의 산란에 영향을 미칠 수 있음을 보고하였으며, Zhang et al. (2024)은 사육 공간의 크기가 증가할수록 어미 꿀벌응애의 산란이 감소하고 산란공의 형태에도 변화가 나타날 수 있음을 제시하였다. 또한, 5령 유충에서 유래하는 화학적 신호가 암컷 꿀벌응애의 번식 활성화와 산란 개시에 관여하는 것으로 보고되었다 (Frey et al., 2013). 이러한 결과들은 꿀벌응애가 정상적인 산란을 개시하기 위해서는 숙주의 적절한 발육단계뿐만 아니라 자연 소방에서 제공되는 물리적·화학적 환경이 함께 필요할 가능성을 보여준다. 따라서 실제 소방의 구조를 그대로 유지하면서 온도와 습도를 통제하는 전용소방 기반 실내 사육법은 젤라틴 캡슐보다 자연적인 꿀벌응애의 번식환경을 효과적으로 재현할 수 있는 것으로 판단된다.
사육환경에 따른 꿀벌응애의 생존율 차이 역시 두 사육 시스템의 적합성 차이를 보여주었다 (Fig. 2A). 젤라틴 캡슐에서 사육된 꿀벌응애의 생존율은 전용소방에서 사육된 개체보다 유의하게 낮았으며, 일부 개체에서는 숙주가 폐사한 후 꿀벌응애도 함께 사망하는 현상이 관찰되었다. 꿀벌응애는 숙주 없이 기아 상태에 놓일 경우 생존기간이 매우 짧은 것으로 알려져 있으므로 (Ramsey et al., 2019), 젤라틴 캡슐에서 관찰된 낮은 꿀벌응애 생존율의 일부는 숙주의 조기 폐사에 따른 지속적인 영양 공급의 중단과 관련되어 있을 가능성이 있다. 실제로 젤라틴 캡슐에서는 꿀벌응애를 접종하지 않은 대조군보다 꿀벌응애를 접종한 숙주의 생존율이 유의하게 낮았던 반면 (Fig. 2B), 전용소방에서는 꿀벌응애가 접종된 숙주도 비교적 높은 생존율을 유지하였으며 실내 사육군과 봉군 내 사육군 사이에도 유의한 차이가 없었다 (Fig. 2C). 이러한 결과는 꿀벌응애의 존재 자체뿐만 아니라 숙주를 유지하는 사육환경이 숙주와 꿀벌응애의 생존에 중요한 영향을 미칠 수 있음을 보여준다.
꿀벌응애의 번식 상태 또한 사육환경에 따라 달라질 가능성이 있다. Muntaabski et al. (2023a)은 초기 산란에 성공한 꿀벌응애와 실패한 꿀벌응애 사이에 유전자 발현 차이가 존재하며, 산란 성공 개체에서는 배아 발달 및 세포사멸과 관련된 유전자들이 상대적으로 활성화되는 반면, 산란에 실패한 개체에서는 번식 과정이 조기에 중단되는 방향의 생리적 변화가 나타날 수 있음을 보고하였다. 따라서 본 연구에서 관찰된 젤라틴 캡슐과 전용소방 사이의 산란 성공 여부 차이 역시 단순한 행동적 차이를 넘어 사육환경에 의해 유도되는 생리적 상태의 차이와 관련될 가능성이 있다. 다만 본 연구에서는 꿀벌응애의 생리적 또는 분자적 변화를 직접 분석하지 않았으므로, 이러한 가능성을 검증하기 위해서는 사육환경에 따른 난소 발달, 산란 관련 유전자 발현 또는 대사적 변화 등에 대한 추가 연구가 필요하다.
전용소방을 이용한 사육에서는 실내 사육군과 봉군 내 사육군 사이에서 감염 유형의 전체적인 분포에는 유의한 차이가 나타났으며 (Fig. 3), 특히 봉군 내 사육군에서 감염 실패 비율이 더 높았다. 반면 단일 감염 비율은 두 조건에서 유사하였고, 다중 감염은 실내 사육군에서 상대적으로 높은 경향을 보였으나 통계적으로 유의하지 않았다. 이러한 차이는 봉군 내에서 수행되는 일벌의 위생활동과 관련될 가능성이 있다. 꿀벌응애에 감염된 유충이 손상되거나 사망하면 위생활동을 수행하는 일벌이 유충 또는 소방에서 발생하는 화학적 신호를 감지하여 해당 소방을 열고 감염된 유충을 제거할 수 있다 (Reyes-Quintana et al., 2019; Wagoner et al., 2019). 특히 여러 마리의 꿀벌응애가 존재하는 다중 감염 소방에서는 숙주의 손상 정도나 관련 신호가 증가하여 일벌에 의해 탐지될 가능성이 높아질 수 있다. 따라서 일벌이 존재하는 봉군 내 사육 조건에서 다중 감염된 소방이 선택적으로 제거되었다면, 상대적으로 높은 감염 실패율과 낮은 다중 감염 비율이 동시에 나타날 수 있다. 반대로 일벌이 존재하지 않는 실내 사육환경에서는 이러한 위생활동의 영향을 배제할 수 있기 때문에 인공접종한 소방을 보다 안정적으로 유지할 수 있다는 장점이 있을 수 있다.
감염 실패 원인을 세분화하여 분석한 결과에서는 실내 사육군과 봉군 내 사육군 사이에 실패 원인의 분포 차이가 나타나지 않았다 (Fig. 4). 두 사육 조건 모두 숙주 제거 또는 사망이 가장 높은 비율을 차지하였으며, 어미 꿀벌응애의 사망과 꿀벌응애의 미확인이 그 뒤를 이었다. 봉군 내에서는 일벌의 위생활동에 의해 손상되거나 감염된 숙주가 제거될 수 있는 반면, 일벌이 없는 실내 조건에서는 유사하게 손상된 숙주가 소방 내부에서 사망한 상태로 남아 있을 수 있다. 따라서 두 조건에서 관찰 형태는 다르지만 숙주의 손상이 감염 실패의 주요 원인으로 작용했을 가능성이 있다. 한편, 인공접종 후 일부 소방에서 어미 꿀벌응애가 확인되지 않았으며 그 비율은 두 사육환경에서 유사하였다. 이러한 현상은 접종 후 소방을 다시 봉합하는 과정에서 형성된 틈을 통해 꿀벌응애가 이동했거나, 접종 자체가 완전하게 이루어지지 않았을 가능성과 관련될 수 있다. 따라서 향후 봉판 내 전용소방 기반 인공접종법을 적용할 때에는 소방의 손상을 최소화하고 접종 후 봉합을 보다 안정적으로 수행할 수 있는 방법을 개선할 필요가 있다.
전용소방을 이용한 실내 사육법이 꿀벌응애의 자연적인 번식능을 유지할 수 있는지를 평가하기 위해 산란율, 번식력 및 추정 번식 성공률의 산란 지표들을 봉군 내 사육 조건과 비교하였다 (Fig. 5). 이때 소방 내부의 어미 꿀벌응애와 딸 꿀벌응애는 큐티클 색 차이로 구분하였다. 미성숙한 딸 꿀벌응애는 어미 꿀벌응애의 검붉은 큐티클 색보다 연한 큐티클 색을 가지며, 전용소방에 암컷 꿀벌응애를 인공접종한 후 8일차에 어미 꿀벌응애가 낳은 첫 번째 딸 꿀벌응애가 성충에 도달한다 (Martin, 1994). 이러한 점들을 고려하여 인공접종 후 8일차에 소방을 검사하여 어미 꿀벌응애가 낳은 자손들을 분석하였다. 산란율은 실내 사육군과 봉군 내 사육군 사이에서 유의한 차이가 없었으며 (Fig. 5A), 어미 꿀벌응애당 생산된 자손 수도 두 조건에서 각각 약 3.4~3.6개체로 유사하였다 (Fig. 5B). 본 연구에서 조사한 소방의 숙주는 약 16일령에 해당하는 번데기 단계였 으며, 이 시기의 일벌 소방에서 어미 꿀벌응애가 평균 약 4마리의 자손을 생산한다는 기존 보고 (Martin, 1994)를 고려하면, 실내 사육군에서도 꿀벌응애의 일반적인 산란 순서와 자손 생산이 비교적 정상적으로 유지된 것으로 판단된다.
꿀벌응애는 일반적으로 번식 과정에서 먼저 수컷 자손을 산란한 후 여러 마리의 암컷 자손을 생산하며, 소방 내부에서 수컷과 암컷 자손 간 교미가 이루어진 후 성숙한 딸 꿀벌응애가 다음 번식주기에 참여한다 (Garrido and Rosenkranz, 2003; Beaurepaire et al., 2017; Häußermann et al., 2020). 따라서 단순히 자손을 생산하는 것뿐만 아니라 수컷과 암컷 자손을 모두 확보하는 것이 다음 세대로의 번식 성공을 위해 중요하다. 본 연구에서는 이를 반영하여 수컷과 암컷 자손을 모두 생산한 어미 꿀벌응애의 비율을 추정 번식 성공률로 평가하였다. 그 결과 실내 사육군과 봉군 내 사육군 간에 추정 번식 성공률의 유의한 차이가 나타나지 않았다 (Fig. 5C). 산란율과 번식력뿐만 아니라 다음 세대의 번식 가능성을 반영하는 지표에서도 두 사육 조건이 유사하였다는 점은 봉판 내 전용소방 기반 실내 사육환경에서도 꿀벌응애의 번식 과정이 상당 부분 유지될 수 있음을 뒷받침한다.
이러한 결과는 기존 봉군 내 연구에서 보고된 꿀벌응애의 번식 수준과도 대체로 일치한다. Häußermann et al. (2020)은 봉군 내에서 인공접종된 꿀벌응애에서 90% 이상의 산란율, 약 3.2~3.6개체의 번식력 및 49.4~62.5%의 추정 번식 성공률을 보고하였다. Muntaabski et al. (2023b) 역시 여러 세대에 걸쳐 암컷 꿀벌응애에서 약 80% 수준의 산란율을 관찰하였으며, 자연적으로 감염된 소방에서도 약 80% 이상의 산란율과 평균 약 4개체의 자손 생산이 보고되어 있다 (Garrido et al., 2003; Frey et al., 2013; Häußermann et al., 2020). 본 연구의 전용소방 실내 사육군에서 나타난 산란율과 번식력은 이러한 기존 보고 범위와 대체로 유사하였으며, 추정 번식 성공률 역시 Häußermann et al. (2020)의 인공접종군에서 보고된 범위와 유사하였다. 자연 감염군과 인공접종군 사이에서 일부 번식 지표에 차이가 나타날 수 있는 것은 인공접종 시기, 접종에 사용된 꿀벌응애의 이전 번식 상태, 숙주의 발육단계 및 봉군 상태 등 실험 조건의 차이에 따른 것으로 추정된다. 따라서 서로 다른 연구의 번식 지표를 직접적으로 비교할 때에는 이러한 방법론적 차이를 함께 고려할 필요가 있다. 특히 본 연구의 전용소방 기반 실내 사육군에서 관찰된 산란율과 자손 생산 수준이 자연 감염 또는 봉군 내 인공접종 조건에서 보고된 기존 연구의 범위와 대체로 유사하였다는 점은, 전용소방을 이용한 실내 사육환경에서도 꿀벌응애의 생존뿐만 아니라 정상적인 산란과 자손 생산을 유지할 수 있음을 보여준다. 따라서 본 사육법은 봉군 외부의 통제된 환경에서 꿀벌응애의 번식 과정을 연구하기 위한 실험적 사육 시스템으로 활용될 가능성이 있다.
종합하면, 젤라틴 캡슐 사육에서는 숙주와 꿀벌응애의 생존율이 낮고 암컷 꿀벌응애의 산란이 관찰되지 않은 반면, 실제 벌집 소방을 유지한 전용소방 사육에서는 높은 생존율과 정상적인 자손 생산이 관찰되었다. 특히 전용소방을 이용한 실내 사육 조건에서 산란율, 번식력 및 추정 번식 성공률이 봉군 내 사육 조건과 유사하게 나타났다는 것은 벌집 소방이 제공하는 물리적·화학적 환경이 꿀벌응애의 번식 유지에 중요한 역할을 할 가능성을 보여준다. 따라서 봉판 내 전용소방 기반 실내 사육법은 봉군에서 발생하는 일벌의 관리행동과 외부 환경변화를 배제하면서 꿀벌응애의 번식생리를 연구할 수 있는 실험 시스템으로 활용될 수 있다. 특히 일정한 온·습도 조건에서 꿀벌응애의 번식을 유지할 수 있다는 점에서 향후 온도 및 습도 변화, 살비제 노출 또는 기타 환경 스트레스가 꿀벌응애의 산란과 번식생리에 미치는 영향을 평가하는 데 활용 가능성이 있다.
다만 본 방법에도 몇 가지 한계가 있다. 봉판 내 전용소방을 사용하더라도 인공접종 이전에 자연적으로 소방에 침입한 꿀벌응애를 완전히 확인하거나 제거하기 어렵기 때문에 다중 감염 가능성을 완전히 배제할 수 없다. 또한 봉개된 소방 내부를 연속적으로 관찰할 수 없어 산란 개시 시점이나 자손의 발육 과정을 실시간으로 추적하기 어렵고, 인공접종 과정에서 소방과 숙주가 물리적으로 손상될 가능성도 있다. 따라서 향후에는 자연 감염 응애를 보다 효과적으로 배제하고 소방의 손상을 최소화하는 접종 방법을 개선하는 동시에, 봉판 내 전용소방 기반 실내 사육법에서 온·습도 및 숙주 조건을 최적화할 필요가 있다. 이러한 보완이 이루어진다면 본 사육법은 꿀벌응애의 번식생리와 환경요인에 대한 반응을 통제된 조건에서 연구하기 위한 유용한 실험적 기반으로 활용될 수 있을 것이다.
적 요
꿀벌응애는 꿀벌 봉군의 약화와 손실을 유발하는 주요 요인 중 하나이며, 효과적인 방제 전략을 개발하기 위해서는 꿀벌응애의 번식생태, 특히 산란 특성에 대한 이해가 필요하다. 그러나 현재까지 제안된 실내 사육법은 꿀벌응애의 산란을 안정적으로 유도하는 데 한계가 있다. 본 연구에서는 기존의 젤라틴 캡슐 사육법과 벌집 소방을 유지한 전용소방 기반 사육법을 비교하고, 전용소방을 이용한 실내 사육 조건에서 꿀벌응애의 번식능이 봉군 내 사육 조건과 유사하게 유지되는지를 평가하였다. 젤라틴 캡슐에서 사육된 꿀벌응애의 생존율은 전용소방에서 사육된 개체보다 유의하게 낮았으며, 꿀벌응애를 접종한 젤라틴 캡슐 내 숙주의 생존율 또한 비접종 대조군보다 유의하게 낮았다. 반면, 전용소방을 이용한 실내 사육군과 봉군 내 사육군에서는 꿀벌응애와 숙주 모두 비교적 높은 생존율을 나타냈으며, 두 사육 조건 간 유의한 차이는 없었다. 또한, 젤라틴 캡슐에서 사육된 암컷 꿀벌응애에서는 산란이 관찰되지 않은 반면, 전용소방에서 사육된 암컷 꿀벌응애에서는 산란이 유도되었다. 전용소방을 이용한 실내 사육군과 봉군 내 사육군의 감염 유형 (감염 실패, 단일 감염 및 다중 감염) 분포는 유의한 차이를 보였으나, 단일 감염 비율과 감염 실패 원인의 분포에는 유의한 차이가 없었다. 또한, 산란율, 번식력 및 추정 번식 성공률을 포함한 번식 지표에서도 두 사육 조건 간 유의한 차이가 나타나지 않았다. 이러한 결과는 벌집 소방의 구조를 유지한 전용소방 기반 실내 사육법이 봉군 내 환경과 유사한 수준으로 암컷 꿀벌응애의 번식을 유도할 수 있으며, 꿀벌응애의 번식생물학을 통제된 조건에서 연구하기 위한 실험 시스템으로 활용될 수 있음을 시사한다.
Acknowledgments
본 연구는 검역축산본부 연구과제 ‘이상기온에 따른 작은벌집딱정벌레감염증 국내현황 및 꿀벌응애 생활사와 감수성 변화 조사 (과제고유번호: 2540001744)’의 지원으로 수행되었습니다. 또한 김희진은 2026년도 교육부 및 경상북도의 경북인재양성체계 (앵커) 사업 (2026-anchor-15-101)의 지원을 받았습니다.
References
-
Beaurepaire, A. L., K. J. Krieger and R. F. Moritz. 2017. Seasonal cycle of inbreeding and recombination of the parasitic mite Varroa destructor in honeybee colonies and its implications for the selection of acaricide resistance. Infect. Genet. Evol. 50: 49-54.
[https://doi.org/10.1016/j.meegid.2017.02.011]

-
Boot, W. J., J. N. Calis and J. Beetsma. 1992. Differential periods of Varroa mite invasion into worker and drone cells of honey bees. Exp. Appl. Acarol. 16(4): 295-301.
[https://doi.org/10.1007/BF01218571]
-
Bowen-Walker, P. L. and A. Gunn. 2001. The effect of the ectoparasitic mite, Varroa destructor on adult worker honeybee (Apis mellifera) emergence weights, water, protein, carbohydrate, and lipid levels. Entomol. Exp. Appl. 101(3): 207-217.
[https://doi.org/10.1046/j.1570-7458.2001.00905.x]
-
Bruce, W., F. Chiesa, S. Marchetti and D. Griffiths. 1988. Laboratory feeding of Varroa jacobsoni Oudemans on natural and artificial diets (Acari: Varroidae). Apidologie 19(2): 209-218.
[https://doi.org/10.1051/apido:19880209]
-
Currie, R. and P. Gatien. 2006. Timing acaricide treatments to prevent Varroa destructor (Acari: Varroidae) from causing economic damage to honey bee colonies. Can. Entomol. 138(2): 238-252.
[https://doi.org/10.4039/n05-024]
-
Dawdani, S., M. O’Neill, C. Castillo, J. E. M. Sámano, H. Higo, A. Ibrahim, S. F. Pernal and E. Plettner. 2023. Effects of dialkoxybenzenes against Varroa destructor and identification of 1-allyloxy-4-propoxybenzene as a promising acaricide candidate. Sci. Rep. 13(1): 11195.
[https://doi.org/10.1038/s41598-023-38187-6]
-
Del Piccolo, F., F. Nazzi, G. Della Vedova and N. Milani. 2010. Selection of Apis mellifera workers by the parasitic mite Varroa destructor using host cuticular hydrocarbons. Parasitology 137(6): 967-973.
[https://doi.org/10.1017/S0031182009991867]
-
Egekwu, N. I., F. Posada, D. E. Sonenshine and S. Cook. 2018. Using an in vitro system for maintaining Varroa destructor mites on Apis mellifera pupae as hosts: Studies of mite longevity and feeding behavior. Exp. Appl. Acarol. 74(3): 301-315.
[https://doi.org/10.1007/s10493-018-0236-0]
-
Frey, E., R. Odemer, T. Blum and P. Rosenkranz. 2013. Activation and interruption of the reproduction of Varroa destructor is triggered by host signals (Apis mellifera). J. Invertebr. Pathol. 113(1): 56-62.
[https://doi.org/10.1016/j.jip.2013.01.007]
-
Fuchs, S. 1990. Preference for drone brood cells by Varroa jacobsoni Oud in colonies of Apis mellifera carnica. Apidologie 21(3): 193-199.
[https://doi.org/10.1051/apido:19900304]
-
Garrido, C. and P. Rosenkranz. 2003. The reproductive program of female Varroa destructor mites is triggered by its host, Apis mellifera. Exp. Appl. Acarol. 31(3): 269-273.
[https://doi.org/10.1023/B:APPA.0000010386.10686.9f]
-
Garrido, C., P. Rosenkranz, R. J. Paxton and L. S. Gonçalves. 2003. Temporal changes in Varroa destructor fertility and haplotype in Brazil. Apidologie 34(6): 535-541.
[https://doi.org/10.1051/apido:2003041]
-
Häußermann, C. K., A. Giacobino, R. Munz, B. Ziegelmann, M. A. Palacio and P. Rosenkranz. 2020. Reproductive parameters of female Varroa destructor and the impact of mating in worker brood of Apis mellifera. Apidologie 51(3): 342-355.
[https://doi.org/10.1007/s13592-019-00713-9]
-
Häußermann, C. K., B. Ziegelmann and P. Rosenkranz. 2016. Spermatozoa capacitation in female Varroa destructor and its influence on the timing and success of female reproduction. Exp. Appl. Acarol. 69(4): 371-387.
[https://doi.org/10.1007/s10493-016-0051-4]
-
Jack, C. J. and J. D. Ellis. 2021. Integrated pest management control of Varroa destructor (Acari: Varroidae), the most damaging pest of Apis mellifera L. (Hymenoptera: Apidae) colonies. J. Insect Sci. 21(5): 6.
[https://doi.org/10.1093/jisesa/ieab058]
-
Jack, C. J., P.-L. Dai, E. van Santen and J. D. Ellis. 2020. Comparing four methods of rearing Varroa destructor in vitro. Exp. Appl. Acarol. 80(4): 463-476.
[https://doi.org/10.1007/s10493-020-00488-0]
-
Johnson, B. L., C. Prouty, C. J. Jack, C. Stuhl and J. D. Ellis. 2024. Developing a method to rear Varroa destructor in vitro. Exp. Appl. Acarol. 92(4): 795-808.
[https://doi.org/10.1007/s10493-024-00905-8]
-
Kanbar, G. and W. Engels. 2003. Ultrastructure and bacterial infection of wounds in honey bee (Apis mellifera) pupae punctured by Varroa mites. Parasitol. Res. 90: 349-354.
[https://doi.org/10.1007/s00436-003-0827-4]
-
Kim, Y. H. and S. Lee. 2022. Current status of fluvalinate resistance in Varroa destructor in Korea and suggestion for possible solution. J. Apic. 37(3): 301-313.
[https://doi.org/10.17519/apiculture.2022.09.37.3.301]
-
Kraus, B. 1993. Preferences of Varroa jacobsoni for honey bees (Apis mellifera L.) of different ages. J. Apic. Res. 32(2): 57-64.
[https://doi.org/10.1080/00218839.1993.11101288]
-
Kuenen, L. and N. Calderone. 1997. Transfers of Varroa mites from newly emerged bees: Preferences for age- and function-specific adult bees (Hymenoptera: Apidae). J. Insect Behav. 10(2): 213-228.
[https://doi.org/10.1007/BF02765554]
-
Lee, J., J. H. Lee, Y. Lim, S. Cho, K. Moon, S. Kim, Y. H. Kim and S. H. Lee. 2025. Rapid spread of Amitraz resistance linked to a unique T115N mutation in the octopamine receptor of Varroa mites in Korea. Pestic. Biochem. Physiol. 210: 106387.
[https://doi.org/10.1016/j.pestbp.2025.106387]
-
Li, W., Y. Zhang, H. Peng, R. Zhang, Z. Wang, Z. Y. Huang, Y. P. Chen and R. Han. 2022. The cell invasion preference of Varroa destructor between the original and new honey bee hosts. Int. J. Parasitol. 52(2-3): 125-134.
[https://doi.org/10.1016/j.ijpara.2021.08.001]
-
Martin, S. J. 1994. Ontogenesis of the mite Varroa jacobsoni Oud. in worker brood of the honeybee Apis mellifera L. under natural conditions. Exp. Appl. Acarol. 18(2): 87-100.
[https://doi.org/10.1007/BF00055033]
-
Medina-Flores, C. A., A. Saucedo Rojas, E. Guzman-Novoa and L. Alaniz Gutiérrez. 2024. Population dynamics of the mite Varroa destructor in honey bee (Apis mellifera) colonies in a temperate semi-arid climate. Insects 15(9): 696.
[https://doi.org/10.3390/insects15090696]
-
Muntaabski, I., J. M. L. Estivalis, R. M. Russo, L. Landi, M. N. Agra, M. C. Liendo, S. B. Lanzavecchia and A. C. Scannapieco. 2023a. Embryogenesis and apoptosis appears as key molecular pathways involved in Varroa destructor reproduction: Gene expression at a key time of mite reproduction. Apidologie 54(5): 49.
[https://doi.org/10.1007/s13592-023-01027-7]
-
Muntaabski, I., R. M. Russo, M. C. Liendo, L. Landi, S. B. Lanzavecchia and A. C. Scannapieco. 2023b. A method for semi-field rearing of Varroa destructor (Acari: Varroidae) to obtain mites of controlled age and specific life cycle. Acarologia 63(2): 383-389.
[https://doi.org/10.24349/eyu1-eweg]
-
Navajas, M., A. Migeon, C. Alaux, M.-L. Martin-Magniette, G. Robinson, J. D. Evans, S. Cros-Arteil, D. Crauser and Y. Le Conte. 2008. Differential gene expression of the honey bee Apis mellifera associated with Varroa destructor infection. BMC Genom. 9: 1-11.
[https://doi.org/10.1186/1471-2164-9-301]
-
Nazzi, F. and Y. Le Conte. 2016. Ecology of Varroa destructor, the major ectoparasite of the western honey bee, Apis mellifera. Annu. Rev. Entomol. 61: 417-432.
[https://doi.org/10.1146/annurev-ento-010715-023731]
-
Oh, H., S. Bak, Y. H. Kim and C. Jung. 2025. Management and landscape factors associated with the infestation levels of Varroa destructor and Tropilaelaps mercedesae in Apis mellifera colonies from Korea. J. Apic. 40(4): 399-406.
[https://doi.org/10.17519/apiculture.2025.11.40.4.399]
-
Park, S., S. An and H. K. Kim. 2023. Evaluation of the attractive effects on insect pheromones for Varroa destructor. J. Apic. 38(4): 335-343.
[https://doi.org/10.17519/apiculture.2023.11.38.4.335]
-
Pervez, M., F. Manzoor and U. Farooq. 2024. Differential expression of antimicrobial peptide encoding genes of honey bee (Apis mellifera) after Varroa mite (Varroa destructor) infestation. J. Apic. Res. 64(3): 1-8.
[https://doi.org/10.1080/00218839.2024.2309789]
-
Piou, V., J. Tabart, V. Urrutia, J.-L. Hemptinne and A. Vétillard. 2016. Impact of the phoretic phase on reproduction and damage caused by Varroa destructor (Anderson and Trueman) to its host, the European honey bee (Apis mellifera L.). PLoS One 11(4): e0153482.
[https://doi.org/10.1371/journal.pone.0153482]
-
Posada-Florez, F., E. V. Ryabov, M. C. Heerman, Y. Chen, J. D. Evans, D. E. Sonenshine and S. C. Cook. 2020. Varroa destructor mites vector and transmit pathogenic honey bee viruses acquired from an artificial diet. PLoS One 15(11): e0242688.
[https://doi.org/10.1371/journal.pone.0242688]
-
Ramsey, S. D., R. Ochoa, G. Bauchan, C. Gulbronson, J. D. Mowery, A. Cohen, D. Lim, J. Joklik, J. M. Cicero and J. D. Ellis. 2019. Varroa destructor feeds primarily on honey bee fat body tissue and not hemolymph. Proc. Natl. Acad. Sci. 116(5): 1792-1801.
[https://doi.org/10.1073/pnas.1818371116]
-
Rawn, D., C. Prouty, A. Gautam, M. Jamison, W. Talton, K. Youngs, K. Narva, B. Manley and C. Jack. 2026. Evaluating the new product NorroaTM against Varroa destructor in managed honey bee (Apis mellifera) colonies. Front. Insect Sci. 6: 1751606.
[https://doi.org/10.3389/finsc.2026.1751606]
-
Reyes-Quintana, M., L. G. Espinosa-Montaño, D. Prieto-Merlos, G. Koleoglu, T. Petukhova, A. Correa-Benítez and E. Guzman-Novoa. 2019. Impact of Varroa destructor and deformed wing virus on emergence, cellular immunity, wing integrity and survivorship of Africanized honey bees in Mexico. J. Invertebr. Pathol. 164: 43-48.
[https://doi.org/10.1016/j.jip.2019.04.009]
-
Rosenkranz, P., P. Aumeier and B. Ziegelmann. 2010. Biology and control of Varroa destructor. J. Invertebr. Pathol. 103: S96-S119.
[https://doi.org/10.1016/j.jip.2009.07.016]
-
Sipos, T., T. Donkó, I. Jócsák and S. Keszthelyi. 2021. Study of morphological features in pre-imaginal honey bee impaired by Varroa destructor by means of computer tomography. Insects 12(8): 717.
[https://doi.org/10.3390/insects12080717]
-
Smoliński, S., A. Langowska and A. Glazaczow. 2021. Raised seasonal temperatures reinforce autumn Varroa destructor infestation in honey bee colonies. Sci. Rep. 11(1): 22256.
[https://doi.org/10.1038/s41598-021-01369-1]
-
Truong, A.-T., M.-S. Yoo, B.-R. Yun, J. E. Kang, J. Noh, T. J. Hwang, S. K. Seo, S.-S. Yoon and Y. S. Cho. 2023. Prevalence and pathogen detection of Varroa and Tropilaelaps mites in Apis mellifera (Hymenoptera, Apidae) apiaries in South Korea. J. Apic. Res. 62(4): 804-812.
[https://doi.org/10.1080/00218839.2021.2013425]
-
Wagoner, K., M. Spivak, A. Hefetz, T. Reams and O. Rueppell. 2019. Stock-specific chemical brood signals are induced by Varroa and deformed wing virus, and elicit hygienic response in the honey bee. Sci. Rep. 9(1): 8753.
[https://doi.org/10.1038/s41598-019-45008-2]
-
Zhang, L., L. Shao, M. F. Raza, Y. Zhang, Z. Li, Z. Y. Huang, Y. Chen, S. Su, R. Han and W. Li. 2024. Large cells suppress the reproduction of Varroa destructor. Pest Manag. Sci. 80(10): 5224-5232.
[https://doi.org/10.1002/ps.8249]
-
Zheng, H., S. Wang, Y. Wu, S. Zou, V. Dietemann, P. Neumann, Y. Chen, H. Li-Byarlay, C. Pirk and J. Evans. 2023. Genomic signatures underlying the oogenesis of the ectoparasitic mite Varroa destructor on its new host Apis mellifera. J. Adv. Res. 44: 1-11.
[https://doi.org/10.1016/j.jare.2022.04.014]