자두 (Prunus salicina Lindl.)에서 양봉꿀벌과 서양뒤영벌의 방화활동 및 착과 효과: 벌 종류와 서양뒤영벌 봉군 수 비교
Abstract
Most Japanese plum (Prunus salicina Lindl.) cultivars are gametophytically self-incompatible, and cross-pollination by insect pollinators is therefore essential for stable fruit set. However, the use of managed pollinators in open-field orchards remains limited, and no guidelines are available on which bee species to introduce or how many colonies to deploy. This study was conducted in 2025 and 2026 to evaluate the applicability of the buff-tailed bumblebee (Bombus terrestris L.) as a pollinator of Japanese plum in comparison with the western honeybee (Apis mellifera L.), and to compare flower-visiting activity and fruit set between treatments with different numbers of bumblebee colonies deployed. In the 2025 net-house trial, the estimated number of bees entering and leaving the hive was 2.98 times higher in honeybee colonies than in bumblebee colonies, whereas the estimated number of flower-visiting bees was 2.99 times higher in bumblebees(both p<0.001). The total flower-to-flower duration was shorter in bumblebees (8.48 s) than in honeybees (11.54 s) (p=0.025), although flower visit duration alone did not differ significantly (p=0.053). In the open-field trial, the median fruit set was 46.70% in the bumblebee treatment and 17.45% in the honeybee treatment, both of which were higher than those of the hand-pollination and pollinator-exclusion treatments (0.00%; p<0.001). In 2026, flower-visiting activity was higher where six colonies were deployed than where three colonies were deployed (p<0.001), and the estimated fruit set of the bumblebee treatment was 15.54% and 3.86%, respectively. These results indicate that B. terrestris actively visits plum flowers and can contribute to improved fruit set, providing baseline information for determining the level of pollinator introduction in open-field plum orchards. However, because the colonies were deployed at a single point per treatment within one orchard and the survey was restricted to trees adjacent to the colonies, the present findings should not be extended to the general effects of bee species or colony number.
Keywords:
Japanese plum, Bombus terrestris, Apis mellifera, Pollination서 론
2024년 국내 자두 (Prunus salicina Lindl.)의 재배면적은 6,220 ha, 생산량은 48,385톤으로 국내 전체 과실 생산량의 약 2.4%를 차지하며, 이 중 약 70%가 경상북도에 집중되어 있다 (국가통계포털, 2024). 우리나라에서 주로 재배되는 동양계 자두 품종은 대부분 자가불화합성이 강하여 (농촌진흥청, 2018), 꽃가루 공급원에 따라 착과율과 과실 품질이 크게 달라지므로 화합성이 있는 품종을 수분수로 함께 재식해야 한다 (Sedgley and Griffin, 1989; Hartmann and Neumüller, 2009; Kwon et al., 2017). 이때 꽃가루를 암술머리로 전달하는 과정은 주로 꿀벌속 (Apis)과 뒤영벌속 (Bombus) 등의 곤충에 의해 이루어지므로 (Guerra and Rodrigo, 2015), 자두의 안정적인 착과는 화분매개곤충의 방화활동에 크게 의존한다.
노지 과수는 전통적으로 야생 화분매개자에 의한 자연 수분에 의존해 왔다. 그러나 서식지 감소, 농약 사용, 병원체 및 기후변화 등의 요인에 의한 야생 화분매개자의 감소는 전 세계적으로 보고되고 있으며 (Potts et al., 2010), 특히 농업적 토지이용과 기후변화의 상호작용은 화분매개곤충의 밀도와 종 다양성을 크게 감소시키는 것으로 분석되었다 (Millard et al., 2023). 따라서 자연 수분에만 의존하는 방식으로는 안정적인 착과를 담보하기 어려운 상황이다.
이러한 가운데 국내 과수의 상업적 화분매개곤충 이용률은 2020년 10.5%에서 2025년 18.5%로 조사되어 (농촌진흥청, 2021, 2025) 현장의 이용이 확대되고 있으며, 자두 역시 2011년 2.8%에서 2020년 10.2%로 증가하였다. 이는 자두 재배 현장에서도 상업적 화분매개곤충에 대한 수요가 발생하고 있음을 의미한다. 그러나 자두에서 어떤 화분매개곤충을 단위면적당 어느 수준으로 투입해야 하는지에 대한 기준은 제시되어 있지 않다.
과수원의 상업적 화분매개에 가장 널리 이용되는 관리형 화분매개곤충은 양봉꿀벌 (Apis mellifera)로, 대규모 일벌 집단을 활용할 수 있고 봉군의 관리와 이동이 용이하기 때문이다 (Delaplane and Mayer, 2000; Papa et al., 2022; Kline et al., 2023). 그러나 양봉꿀벌의 방화활동은 기온, 일사량, 운량 및 풍속 등 기상 조건에 크게 좌우되며 (Brittain, 1933; Vicens and Bosch, 2000), 일반적으로 기온 12~14℃ 및 일사량 약 300 W/m2 이상의 조건에서 방화활동이 이루어진다 (Connell, 2000; Vicens and Bosch, 2000). 따라서 저온과 강풍, 흐린 날씨가 빈번한 이른 봄에 개화하는 자두에서는 양봉꿀벌만으로 안정적인 화분매개를 확보하기 어려울 수 있다.
이에 비해 서양뒤영벌 (Bombus terrestris)은 불리한 기상 조건에서도 상대적으로 높은 화분매개 활동을 유지하는 것으로 보고되었다. 배 개화기에 양봉꿀벌은 서양뒤영벌보다 기온과 조도 변화에 민감하였으며 (Lee et al., 2016), 사과 과수원에서도 양봉꿀벌이 다양한 기상변수에 더 민감하게 반응하여 서양뒤영벌이 이를 보완할 가능성이 제시되었다 (Karbassioon et al., 2023). 또한 중국 북부의 체리 과수원에서 서양뒤영벌은 재래꿀벌 (Apis cerana)보다 일중 활동시간이 길고 화분 운반율도 높았다 (Huang et al., 2025). 이러한 특성을 바탕으로 뒤영벌은 1990년대 초부터 온실 작물의 상업적 화분매개곤충으로 활용되어 왔으며 (Kevan et al., 1991), 최근에는 과수에서도 효과가 보고되고 있다. 배 시험포에 서양뒤영벌을 추가 투입한 경우 과실당 종자 수, 착과율, 과실 크기 및 수량이 증가하였고 (Zisovich et al., 2012), 시설재배 복숭아에서 Bombus patagiatus는 양봉꿀벌보다 주두에 더 많은 화분립을 부착시켰으며 초기 착과율도 높았다 (Zhang et al., 2015). 차단망을 설치한 사과 과수원에서도 Bombus impatiens 수분구의 과실 품질과 생산량은 관행 수분 처리구와 유사한 수준이었다 (Normandeau Bonneau et al., 2021).
국내에서는 자두 망실하우스에서 양봉꿀벌, 서양뒤영벌 및 머리뿔가위벌 (Osmia cornifrons)의 화분매개 효과가 비교된 바 있다 (이 등, 2011). 이 연구에서 착과율은 세 처리구에서 각각 10.4, 9.9 및 10.1%로 유사하였고 자연수분구의 7.8%보다 수치상 높았으며, 무처리구에서는 착과가 이루어지지 않아 자두에서 화분매개곤충 투입의 효과가 확인되었다. 그러나 이는 화분매개곤충의 이동이 제한된 망실 조건에서 수행된 결과이다. 격리 조건은 벌의 방향정위와 비행행동에 영향을 미치며 그 적응 정도가 벌 종류에 따라 다르게 나타나므로 (Dag, 2008), 격리 조건에서의 벌 종류 간 비교는 자두에 대한 화분매개 능력의 차이와 격리 적응력의 차이를 함께 반영할 수 있다. 따라서 실제 재배환경인 노지 조건에서의 검증이 필요하다.
이에 본 연구는 두 가지 목적으로 수행하였다. 첫째, 2025년에 상업적 화분매개의 두 축인 양봉꿀벌과 서양뒤영벌을 대상으로 방화활동 특성을 비교하고, 노지 시험포에 두 벌 종을 직접 방사하였을 때의 착과율과 과실 특성을 인공수분 및 화분매개곤충 차단 처리와 비교하여 자두 화분매개에서의 적용 가능성을 평가하였다. 둘째, 상업적 화분매개곤충을 현장에 적용하기 위해서는 단위면적당 투입 수준에 대한 기준이 필요하므로, 2026년에는 규격화된 봉군을 상시 공급받을 수 있는 서양뒤영벌을 대상으로 투입 봉군 수를 달리한 시험구에서 방화활동과 착과율을 비교하였다.
재료 및 방법
1. 시험장소 및 시험설계
본 연구는 국립원예특작과학원 자두 유전자원 시험포 (35°49ʹ41.88ʺN, 127°01ʹ39.03ʺE) 에서 2025년과 2026년 자두 개화기에 수행하였다. 시험포는 자두 유전자원을 보존·평가하기 위한 포장으로 조사 대상 나무가 각각 서로 다른 품종으로 구성되어 있어, 처리구 간 공시품종을 동일하게 배치하는 데에는 구조적인 제약이 있었다. 2025년에는 망실하우스에서 양봉꿀벌 (Apis mellifera L.)과 서양뒤영벌 (Bombus terrestris L.)의 일벌 소문 입·출입 수, 방화활동 수 및 방화행동을 비교하였다. 망실하우스에서는 시험기간 중 수목 병해가 발생하여 정상적인 착과 조사가 어려웠으므로, 착과 관련 조사는 노지 시험포에서 수행하였다. 같은 해 노지 시험포에서는 양봉꿀벌 수분구, 서양뒤영벌 수분구, 인공수분구 및 화분매개곤충 차단구를 설정하여 착과율을 비교하고, 벌수분 처리구에서 수확한 과실의 특성을 조사하였다. 2025년 자두 시험포의 대표 만개일은 4월 7일로 개화율이 전체 시험포 기준 80% 이상이었다.
2026년에는 노지 시험포에서 서양뒤영벌의 투입 봉군 수를 달리한 두 처리구를 설정하여 방화활동 수와 수분 처리별 착과율을 비교하였다. 2026년 자두꽃의 대표 만개일은 4월 8일이었다.
2. 시험구 구성, 공시품종 및 봉군 배치
2025년 망실 시험은 폭 6 m×길이 12 m×높이 4 m 규모의 망실하우스 3동에서 수행하였으며, 동당 자두나무 2주씩 총 6주를 이용하였다. 양봉꿀벌 처리구는 1동에 소비 2매, 일벌 약 4,000마리 규모의 봉군을 배치하고 공시품종으로 ‘채희’를 이용하였다. 서양뒤영벌 처리구는 자두 품종에 따른 차이를 확인하기 위하여 ‘알프스 왕자’와 ‘Rosa Grande’를 각각 배치한 2동에 일벌 약 80마리 규모의 봉군을 도입하였다. 사전 분석에서 두 품종 간 방화활동 수의 차이가 확인되지 않아 자료를 통합하여 분석하였다.
2025년 노지 시험은 약 1 ha 규모의 자두 시험포에서 수행하였다. 처리 간 격리를 위한 망실을 설치하지 않고 벌통으로부터의 거리를 이용하여 처리를 구분하였다. 이는 망실과 같은 격리 조건이 벌의 방향정위와 비행행동에 영향을 미치고 그 적응 정도가 벌 종류에 따라 다르며 (Dag, 2008), 노지 과수원에서는 실제로 피복 없이 봉군을 투입하므로 현장 적용 조건과 동일한 환경에서 화분매개 효과를 평가하기 위함이다. 또한 벌은 중심장소 채집자로서 화원의 질이 유사하면 벌통에 가까운 화원을 우선 이용하며 특정 지점으로 향하는 외역벌 비율은 거리에 따라 감소하므로 (Schmid-Hempel et al., 1985; Osborne et al., 2008; Cunningham et al., 2016), 각 봉군으로부터 반경 10 m 이내의 나무를 조사 전에 조사목으로 선정하여 처리구별 효과가 구분되도록 하였다. 이에 따라 양봉꿀벌과 서양뒤영벌의 주 활동구역이 분리되도록 각 봉군을 시험포의 대각선 방향 반대편에 130 m 간격으로 배치하였으며, 봉군은 3월 31일부터 4월 22일까지 설치하였다. 양봉꿀벌 처리구에는 소비 4매 규모로 약 8,000마리의 일벌이 포함된 봉군을, 서양뒤영벌 처리구에는 일벌 약 200마리 규모의 봉군을 배치하였다. 조사목의 공시품종은 양봉꿀벌 처리구가 ‘극조숙리’, ‘자리’ 및 ‘La Crescent’, 서양뒤영벌 처리구가 ‘쯔아’, ‘원교마03’, ‘Ozark Premier’, ‘토파즈’ 및 ‘Vesennee Plamya’였다.
2026년 시험은 2025년과 동일한 자두 시험포에서 수행하였다. 자두 노지재배에서 서양뒤영벌의 적정 투입 수준을 검토하기 위하여 투입 봉군 수를 달리한 두 처리구를 설정하였다. 시험포장을 두 구역으로 구분하고, 봉군 배치 지점 간 활동 범위의 중첩을 줄이기 위하여 각 구역의 바깥쪽 끝줄에 봉군을 배치하였으며 두 지점 간 거리는 108 m였다. 한쪽 시험구에는 660 m2에 6봉군을, 반대쪽 시험구에는 1,350 m2에 3봉군을 배치하였으며, 투입 당시 일벌 수가 120마리 이상인 봉군 9개를 4월 1일에 설치하였다. 조사는 2025년과 동일한 원칙에 따라 각 봉군 배치 지점으로부터 반경 10 m 이내의 나무를 대상으로 하였으며, 6봉군 처리구에서는 ‘White Plum’, ‘조미려’, ‘Red Heart’, ‘황향’, ‘Toka’, ‘Omega’, ‘하니레드’, ‘원교마11’ 및 ‘08-28’의 9주를, 3봉군 처리구에서는 ‘Alderman’, ‘Marth Rudy’, ‘Scarlet’, ‘원교마10’, ‘자봉’, ‘PLWG016’, ‘플람정상’, ‘키요카’ 및 ‘원교마03’의 9주를 조사하였다.
3. 수분 처리, 화분매개 활동 및 기상환경 조사
2025년 노지 시험은 양봉꿀벌 수분구, 서양뒤영벌 수분구, 인공수분구 및 화분매개곤충 차단구를 설정하였다. 양봉꿀벌 및 서양뒤영벌 수분구에서는 개화기간 동안 벌이 꽃을 자유롭게 방화하도록 하였다. 인공수분구와 화분매개곤충 차단구는 개화 전에 선정한 시험 가지를 24×35 cm 크기의 망으로 피복하였으며, 처리구별로 15개 이상의 망을 설치하였다. 인공수분구는 꽃이 개화한 시점에 망을 일시적으로 열고, 개화한 자두꽃의 수술에서 꽃가루를 손가락 끝에 직접 묻힌 후 다른 꽃의 암술머리에 접촉시켜 인공수분하였다. 처리 후에는 외부 화분매개곤충의 방화를 차단하기 위해 즉시 다시 망으로 밀폐하였다. 화분매개곤충 차단구는 개화기간 동안 망을 유지하고 별도의 수분 처리를 하지 않았다.
2026년에는 각 시험장소에 서양뒤영벌 수분구, 인공수분구 및 화분매개곤충 차단구를 설정하였다. 인공수분구와 화분매개곤충 차단구는 21×40 cm 크기의 망을 사용하여, 2025년과 동일한 방법으로 수행하였다.
2025년 화분매개벌 활동성 조사는 4월 8일과 9일에 10:00, 10:30, 11:30, 12:30, 13:30, 14:30, 15:30, 16:30 및 17:30까지 총 9개 시간대에 조사하였다. 소문 입·출입 수를 벌통 출입구에서 5분 동안 벌통으로 들어가거나 밖으로 나오는 벌의 총 수를 계수하였다. 방화활동은 망실하우스 3동에 식재된 총 6주의 자두나무를 대상으로 조사하였다. 각 망실하우스의 면적은 72 m2 (6 m×12 m)였으며 동당 자두나무 2주가 식재되어 있었다. 양봉꿀벌 처리구 1동에서는 양봉꿀벌을, 서양뒤영벌 처리구 2동에서는 서양뒤영벌을 대상으로 개화된 자두꽃에 착지하여 화분 또는 화밀을 수집하는 행동을 보인 벌의 수를 조사 시간대별로 5분 동안 계수하였다. 자두꽃에서의 방화행동은 개별 벌을 연속적으로 추적하여 조사하였다. 꽃 체류시간은 벌이 꽃에 착지한 시점부터 해당 꽃을 떠날 때까지의 시간으로, 꽃 간 이동시간은 한 꽃에서 이탈한 시점부터 다음 꽃에 착지할 때까지의 시간으로 정의하였다. 총 꽃 방화소요시간은 꽃 체류시간과 꽃 간 이동시간의 합으로 산출하였다. 각 행동 지표는 벌 종별로 40회 이상 반복 측정하였다.
2026년 화분매개 활동은 4월 7일, 8일 및 14일에 실시하였다. 시험장소별로 9그루씩 총 18그루의 자두나무를 조사목으로 선정하였다. 동일한 조사목을 대상으로 4월 7일에는 14:00부터 17:00까지, 4월 8일에는 09:00부터 17:00까지, 4월 14일에는 09:00부터 12:00까지 각 조사 시간대에 5분 동안 자두꽃을 방화한 벌의 수를 계수하였다. 이를 통해 총 306개 (18그루×17회)의 반복 관측자료를 수집하였다.
자두꽃에 벌 활동 조사와 동시에 기온, 상대습도, 조도 및 자외선 강도를 측정하였다. 기상환경은 데이터 로거 TR-74Ui (T&D Corporation, Matsumoto, Japan)를 이용 하여 기록하였다. 기온은 ℃, 상대습도는 %, 조도는 lx, 자외선 강도는 mW/cm2 단위로 나타냈다. 데이터 로거는 20분 간격으로 1회 측정하도록 설정하였다. 각 벌 활동 조사 시점의 기상 관측값을 해당 조사자료와 대응하여 분석하였다.
4. 착과율 및 과실 특성 조사
개화 전에 수분 처리구별 시험 가지를 선정하여 가지별 총 꽃 수를 계수하였다. 벌 수분구는 조사목당 30개 가지를, 인공수분구와 화분매개곤충 차단구는 처리구별로 망을 씌운 15개 이상의 가지를 조사 대상으로 하였다. 2025년에는 각 처리구의 자두나무 6주를 대상으로 5월 26일에, 2026년에는 두 시험구에서 각 9주씩 총 18주를 대상으로 5월 13일에 착과 과실 수를 조사하였다. 착과율 (%)은 가지별로 총 꽃 수에 대한 착과 과실 수의 비율을 구한 뒤, 조사목별 평균값으로 산출하였다.
2025년에는 양봉꿀벌 및 서양뒤영벌 수분구에서 각각 서로 다른 품종의 자두나무 3주를 선정하여 나무당 10과씩 채취하고, 두 수분구 합계 60과를 대상으로 과실 길이, 과실 직경, 과중, 과실 경도, 가용성 고형물 함량 및 적정산도를 조사하였다. 과중은 전자저울 (RX2202KR, OHAUS Corporation, Parsippany, NJ, USA)을 이용하여 g 단위로 측정하였고, 과실 길이와 직경은 디지털 캘리퍼스 (500-181-30, Mitutoyo, Kawasaki, Japan)를 이용하여 mm 단위로 측정하였다. 과실 경도는 과실경도계 (STENTOR II, Andilog, Vitrolles, France)를 이용하여 N 단위로 측정하였으며, 가용성 고형물 함량은 과즙을 굴절당도계 (GMK-835N, G-WON Hitech Co., Ltd., Seoul, Korea)로 측정하여 °Brix로 나타냈다. 적정산도는 자동 적정기 (TitroLine 5000, SI Analytics GmbH, Mainz, Germany)를 이용하여 과즙을 0.1 N NaOH로 pH 8.1까지 적정한 후, 사과산 (malic acid) 함량으로 환산하여 백분율 (%)로 나타냈다. 과실 길이, 과실 직경, 과중 및 가용성 고형물 함량은 총 60과, 과실 경도는 22과, 적정산도는 18과를 분석하였다.
5. 통계분석
통계분석은 IBM SPSS Statistics 27.0 (IBM Corp., Armonk, NY, USA)과 R 4.5.1 (R Core Team, Vienna, Austria)을 이용하였다. 일반화선형모형, t-검정, Kruskal-Wallis 검정 및 분산분석은 SPSS로, 일반화선형혼합모형은 R의 glmmTMB 패키지로 분석하였으며, 추정 주변 평균과 쌍별 비교에는 emmeans 패키지를, 모형 진단에는 DHARMa 패키지를 이용하였다.
본 연구는 처리별 봉군을 각각 한 지점에 배치한 설계이므로, 통계적 반복 단위는 조사 항목에 따라 달랐다. 소문 입·출입 수와 방화활동 수는 조사일과 조사 시간대, 방화행동은 추적한 개별 벌, 착과율은 개별 조사목, 과실 특성은 개별 과실을 반복 단위로 하였다.
2025년 소문 입·출입 수와 방화활동 수는 과산포를 고려하여 음이항 일반화선형모형으로 분석하였다. 벌 종류와 조사 시간을 요인으로, 방화활동 수 분석에는 기온, 상대습도 및 조도를 공변량으로 포함하였다. 조도와 자외선 강도는 동일 모형에 함께 포함하지 않고 조도를 포함한 모형을 주 분석으로, 자외선 강도를 포함한 모형을 민감도 분석으로 수행한 뒤 AIC로 비교하였다. 방화행동인 꽃 체류시간, 꽃 간 이동시간 및 총 방화소요시간은 벌 종류 간 t-검정으로 비교하고, 총 방화소요시간의 효과크기는 Hedges’ g로 산출하였다.
2025년 노지 착과율은 Kruskal-Wallis 검정으로 분석하고 Dunn의 쌍별 비교를 Bonferroni 방법으로 보정하였다. 과실 특성은 벌 수분 처리를 독립변수로 하는 분산분석으로 비교하였으며, 조사목 정보는 모형에 포함하지 않았다.
2026년 방화활동 수는 음이항 일반화선형모형으로 분석하였다. 투입 봉군 수 처리와 조사 시간 및 두 요인의 상호작용을 요인으로, 기온, 상대습도 및 조도를 공변량으로 포함하였다.
2026년 착과율은 조사 단위별 총 꽃 수와 착과 과실 수를 이용하여 로짓 연결함수를 적용한 베타-이항 일반화선형혼합모형으로 분석하였다. 시험장별 봉군 배치 수준 (660 m2의 6봉군 및 1,350 m2의 3봉군), 수분 처리 방법 및 두 요인의 상호작용을 고정 효과로 설정하고, 조사목을 임의 효과로 포함하였다. 추정 주변 평균과 95% Wald 신뢰구간은 로짓 척도에서 산출한 후 역로짓 변환하여 착과율로 제시하였으며, 쌍별 비교의 p값은 Tukey 방법으로 보정하였다.
결 과
1. 벌 종류별 소문 입·출입 수와 방화활동 수
자두 개화기 동안 벌 종류별 봉군의 소문 입·출입 수를 조사한 결과, 양봉꿀벌 봉군에서 서양뒤영벌 봉군보다 전반적으로 많은 출입 개체가 관찰되었다 (Fig. 1). 벌 종류와 조사 시간을 포함한 음이항 일반화선형모형은 절편모형보다 유의하게 적합하였으며 (likelihood-ratio χ2=33.083, df=9, p<0.001), 벌 종류의 효과는 유의하였으나 (Wald χ2=31.153, df=1, p<0.001) 조사 시간의 효과와 벌 종류×조사 시간 상호작용은 유의하지 않았다 (Wald χ2=2.695, df=8, p=0.952; Wald χ2=8.941, df=8, p=0.347). 조사 시간을 보정한 추정 소문 입·출입 수는 양봉꿀벌이 89.56마리/5분 (95% CI: 66.66~120.34), 서양뒤영벌이 30.01마리/5분 (95% CI: 23.96~37.58)이었으며, 양봉꿀벌 봉군의 소문 활동은 서양뒤영벌 봉군보다 약 2.98배 높게 추정되었다 (rate ratio=2.984, 95% CI: 2.033~4.381). 반면, 방화활동 벌 수는 서양뒤영벌에서 더 높게 나타났다 (Fig. 2). 모형의 적합 (likelihood-ratio χ2=34.775, df=9, p<0.001)과 벌 종류의 주 효과 (Wald χ2=32.029, df=1, p<0.001)는 모두 유의하였다. 조사 시간을 보정한 추정 방화활동 벌 수는 양봉꿀벌이 2.90마리/5분 (95% CI: 2.07~4.04), 서양뒤영벌이 8.64마리/5분 (95% CI: 7.15~10.45)이었다. 양봉꿀벌의 방화활동 벌 수는 서양뒤영벌의 0.335배로 추정되었으며 (rate ratio=0.335, 95% CI: 0.229~0.489), 이를 역수로 환산하면 서양뒤영벌의 방화활동 벌 수는 양봉꿀벌보다 약 2.99배 높았다 (rate ratio=2.985, 95% CI: 2.044~4.360). 이 비율은 시간대별 관측값의 단순평균 비율이 아니라, 음이항 일반화선형모형에서 산출된 벌 종류 회귀계수의 지수변환값을 역수로 환산한 모형 기반 추정비이다. 조사 시간과 벌 종류×조사 시간 상호작용은 유의하지 않아 (Wald χ2=11.998, df=8, p=0.151; Wald χ2=1.509, df=8, p=0.993), 조사 시간에 따른 변화 양상은 벌 종류에 따라 유의하게 다르지 않았으나 조사 시간 전반의 방화활동 수준은 서양뒤영벌에서 더 높게 나타났다.
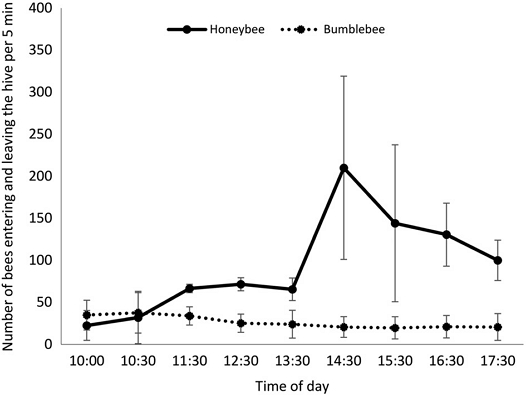
Diurnal hive entrance activity of honeybee and bumblebee colonies during plum flowering. Values are the mean±SD of the number of bees entering and leaving the hive per 5 min.
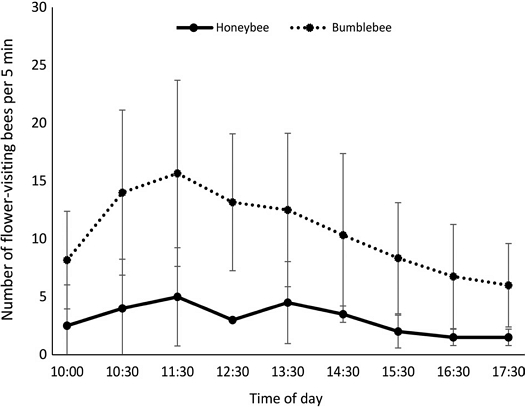
Diurnal flower-visiting activity of honeybees and bumblebees during plum flowering. Values are the mean±SD number of flower-visiting bees observed per 5 min.
기상 요인을 공변량으로 포함한 모형에서도 벌 종류의 효과는 유의하였다 (Wald χ2=36.747, df=1, p<0.001; Table 1). 조사 시간, 기온, 상대습도 및 조도의 효과는 유의하지 않았다. 조도를 자외선 강도로 대체한 민감도 분석에서도 벌 종류의 효과가 유의하였으며 (Wald χ2=35.893, df=1, p<0.001), 자외선 강도의 효과는 유의하지 않았다 (Wald χ2=2.147, df=1, p=0.143). 두 모형의 AIC 차이는 0.57이었다.

Effects of bee species, time of day, and weather variables on the number of flower-visiting bees on plum blossoms
2. 벌 종류별 방화행동
평균 꽃 체류시간은 양봉꿀벌 7.51초, 서양뒤영벌 5.18초로 서양뒤영벌이 짧은 경향이었으나 통계적으로 유의하지 않았다 (Welch’s t=1.979, df=57.88, p=0.053; Fig. 3A). 꽃 간 이동시간도 양봉꿀벌 4.04초, 서양뒤영벌 3.31초로 차이가 유의하지 않았다 (t=1.328, df=133, p=0.187; Fig. 3B). 반면 총 방화소요시간은 서양뒤영벌이 8.48초로 양봉꿀벌 11.54초보다 유의하게 짧았다 (Welch’s t=2.294, df=67.56, p=0.025, Hedges’ g=0.463; Fig. 3C).
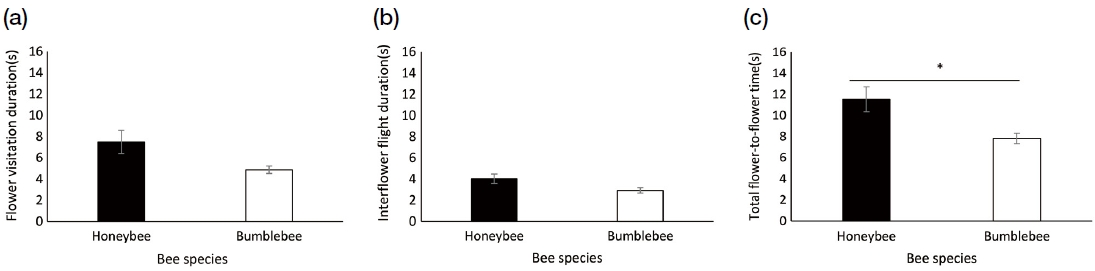
Flower-visiting behavior of honeybees and bumblebees on plum blossoms. Values represent the mean±SD of (a) flower visit duration, (b) interflower flight duration, and (c) total flower-to-flower duration. The asterisk indicates a significant difference between bee species (p<0.05).
3. 벌 종류별 착과율과 과실 특성
수분 처리에 따른 착과율은 처리 간 유의한 차이를 보였다 (Kruskal-Wallis χ2=41.343, df=3, p<0.001; Fig. 4). 착과율 자료가 정규성 가정을 충족하지 않아 처리별 결과는 중앙값과 사분위수 범위 (Q1~Q3)로 제시하였다. 처리별 착과율의 중앙값 (Q1~Q3)은 서양뒤영벌 수분구 46.70% (16.70~54.80), 양봉꿀벌 수분구 17.45% (9.88~22.53), 인공수분구 0.00% (0.00~1.70), 화분매개곤충 차단구 0.00% (0.00~0.00)였다. Dunn의 쌍별 비교 결과 양봉꿀벌 및 서양뒤영벌 수분구의 착과율은 인공수분구와 화분매개곤충 차단구보다 높았으며 (모두 p<0.001), 인공수분구와 차단구 사이에는 차이가 확인되지 않았다 (p=1.000).
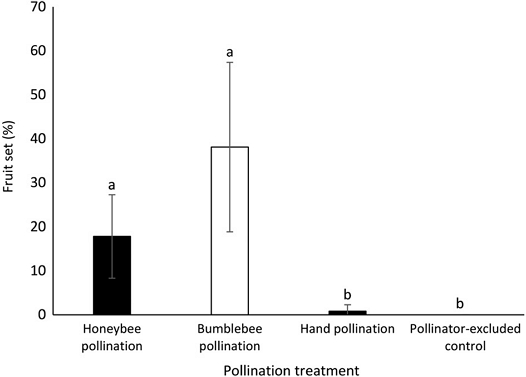
Fruit set according to pollination treatment in Japanese plum. Boxes indicate the interquartile range (Q1~Q3), horizontal lines within boxes indicate medians, whiskers indicate the observed data range, and points indicate individual observations.
두 벌 수분구에서 채취한 과실의 특성을 비교한 결과, 과실 직경은 양봉꿀벌 수분구가 45.8±7.6 mm로 서양뒤영벌 수분구의 40.3±9.2 mm보다 컸다 (F1, 58=6.265, p=0.015; Table 2). 과실 경도는 서양뒤영벌 수분구가 53.5±13.8 N으로 양봉꿀벌 수분구의 30.5±8.7 N보다 높았다 (F1, 20=21.837, p<0.001). 과실 길이, 과중, 가용성 고형물 함량 및 적정산도는 두 수분구 간 차이가 유의하지 않았다 (모두 p>0.05).
Fruit characteristics of Japanese plum under honeybee and bumblebee pollination treatments
4. 투입 봉군 수별 방화활동과 착과율
서양뒤영벌의 방화활동 벌 수는 660 m2에 6봉군을 배치한 시험장 (90.9봉군/ha)에서 0.98마리/5분이었으며, 1,350 m2에 3봉군을 배치한 시험장 (22.2봉군/ha)에서는 0.20마리/5분으로 관찰되었다 (Fig. 5). 투입 봉군 수 처리의 효과는 유의하였으며 (Wald χ2=43.322, df=1, p<0.001), 조도와 방화활동 수 간에도 유의한 관계가 나타났다 (Wald χ2=8.661, df=1, p=0.003; Table 3). 반면 조사 시간 (Wald χ2=13.650, df=8, p=0.086), 기온 (Wald χ2=0.052, df=1, p=0.819), 상대습도 (Wald χ2=0.273, df=1, p=0.602) 및 투입 봉군 수 처리×조사 시간 상호작용 (Wald χ2=9.856, df=8, p=0.275)의 효과는 유의하지 않았다.
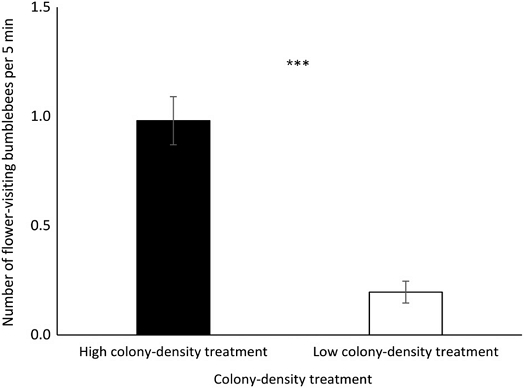
Number of flower-visiting bumblebees on plum blossoms under different colony deployment treatments. Values represent the mean±SE. Error bars indicate the precision of the estimated means. Six and three colonies were deployed in the respective treatments (Wald χ2=43.322, df=1, p<0.001).
Effects of colony deployment, time of day, and weather variables on the number of flower-visiting bumblebees on plum blossoms in 2026
착과율에 대한 분석 결과, 투입 봉군 수 처리 (Wald χ2=23.049, df=1, p<0.001), 수분 처리 방법 (Wald χ2=161.520, df=2, p<0.001) 및 두 요인의 상호작용 (Wald χ2=9.366, df=2, p=0.009)이 모두 유의하였다 (Table 4). 상호작용이 유의하였으므로 처리구별로 수분 처리 방법의 단순 효과를 비교하였다.
Effects of colony deployment and pollination treatment on fruit set of Japanese plum: beta-binomial generalized linear mixed-model analysis
6봉군 처리구에서 서양뒤영벌 수분구의 추정 착과율은 15.54% (95% CI: 10.80~21.85)로 가장 높았고, 인공수분구는 1.93% (95% CI: 1.16~3.20), 화분매개곤충 차단구는 0.76% (95% CI: 0.23~2.49)였다 (Table 5). Tukey 보정 다중비교 결과 서양뒤영벌 수분구는 인공수분구 및 차단구보다 높았으며, 인공수분구와 차단구 사이에는 차이가 확인되지 않았다. 3봉군 처리구에서도 서양뒤영벌 수분구의 추정 착과율이 3.86% (95% CI: 2.45~6.02)로 가장 높았고, 인공수분구와 차단구는 각각 0.68% (95% CI: 0.35~1.32)와 1.38% (95% CI: 0.54~3.51)였다. 서양뒤영벌 수분구의 착과율은 인공수분구보다 높았으나, 차단구와의 차이는 유의수준에는 이르지 못하였다 (p=0.055). 서양뒤영벌 수분구의 추정 착과율을 두 처리구 간 직접 비교하면, 6봉군 처리구가 3봉군 처리구보다 약 4.03배 높았다 (15.54% vs. 3.86%). 다만 두 처리구는 서로 다른 면적과 품종 구성의 시험장에 조성되었으므로, 이러한 차이를 봉군 수 또는 봉군 밀도만의 효과로 해석하는 데에는 한계가 있다.
Estimated marginal means of fruit set of Japanese plum according to colony deployment and pollination treatment
고 찰
자두는 자가불화합성 품종이 대부분이어서 화분매개곤충에 의한 교차수분 없이는 안정적인 착과를 기대하기 어렵다. 그러나 노지 과수에서는 화분매개곤충의 이용이 아직 제한적이며, 어떤 벌을 얼마나 투입해야 하는지에 대한 기준도 마련되어 있지 않다. 본 연구에서는 상업적 화분매개에 이용되는 양봉꿀벌과 서양뒤영벌을 노지 자두 시험포에 직접 방사하여 방화활동과 착과 효과를 비교하고, 서양뒤영벌의 투입 봉군 수에 따른 차이를 확인하였다. 그 결과 서양뒤영벌은 양봉꿀벌보다 방화활동이 활발하였고, 벌을 방사한 처리구의 착과율이 인공수분구와 차단구보다 높았으며, 투입 봉군 수가 많은 처리구에서 방화활동과 착과율이 모두 높게 나타났다.
1. 벌 종류별 소문 출입과 방화활동
양봉꿀벌은 소문 입·출입 수가 서양뒤영벌보다 약 2.98배 많았으나, 자두꽃에서의 방화활동 수는 오히려 서양뒤영벌이 약 2.99배 높았다. 소문 밖으로 나온 일벌이 더 많았음에도 꽃을 찾은 개체가 적었던 것은 망실이라는 격리공간에 대한 두 벌 종류의 적응 차이에서 비롯된 것으로 판단된다.
꿀벌은 하늘의 편광 패턴을 나침반으로 이용하여 항법하며 (von Frisch, 1967), 벌통이 새로운 장소로 옮겨지면 이전에 습득한 주변 정보가 더 이상 유효하지 않아 지형지물을 다시 학습하는 재정위 비행을 수행한다 (Degen et al., 2018). 그런데 격리 조건에서는 이러한 정위에 필요한 시각 정보가 제한되어 벌의 방향정위와 비행행동에 영향을 미치며, 그 정도는 벌 종류에 따라 다르게 나타난다 (Dag, 2008). 본 시험에 투입한 양봉꿀벌 봉군은 외부 양봉장에서 이미 외역활동을 수행하던 일벌로 구성되어 있었고, 꿀벌 일벌이 내역활동을 거쳐 외역봉으로 전환되기까지 통상 3주 내외가 소요되는 점 (Winston, 1987)을 고려하면 봉군 설치부터 조사까지 9일 동안 망실 내에서 새로 외역활동을 시작한 일벌의 비중은 크지 않았을 것으로 보인다. 그 결과 소문 밖으로 나온 개체가 자두꽃으로 향하지 못하였을 가능성이 있다. 반면 서양뒤영벌은 격리공간에 도입된 직후부터 방향감각을 잃지 않고 활동을 시작하는 것으로 알려져 있어 (Guerra-Sanz, 2008), 망실 내에서도 곧바로 자두꽃을 찾아간 것으로 보인다.
이러한 차이는 개화기간이 짧은 과수에서 특히 중요하다. 자두는 개화기가 짧아 봉군이 새로운 환경에 적응할 시간적 여유가 크지 않으므로, 투입 직후부터 방화활동을 시작할 수 있는지가 화분매개 효과를 좌우할 수 있다.
소문 입·출입 수에는 꽃 이외의 자원 탐색이나 배설 비행 등 봉군 내외의 여러 이동이 포함되지만, 방화활동 수는 조사 대상 꽃에서 실제로 이루어진 활동만을 나타낸다. 두 지표가 상반된 결과를 보인 데에는 이러한 차이도 함께 작용하였을 것으로 보이며, 봉군의 소문 출입량만으로 화분매개 활동을 평가하기는 어렵다고 생각된다.
서양뒤영벌의 총 방화소요시간은 8.48초로 양봉꿀벌의 11.54초보다 짧았다. 같은 시간 동안 더 많은 꽃을 방문할 수 있다는 의미이며, 방화활동 수가 높게 나타난 결과와도 연결된다. 망실 조건에서 수행된 선행 연구에서도 서양뒤영벌의 방화시간이 양봉꿀벌 화분채집봉과 유사하게 짧았다고 보고되어 (이 등, 2011) 본 결과와 일치하였다. 그러나 방화시간이나 방화빈도만으로 화분매개 효율을 판단할 수는 없다 (King et al., 2013). 화분매개 효과는 벌의 체표에 부착된 화분량과 방화 시 암술머리 접촉행동 (Woodcock et al., 2013), 꽃가루의 화합성 (Sapir et al., 2008; Guerra and Rodrigo, 2015), 암술머리에 침착된 화분량과 화분관 발달 등에 따라 달라진다 (Stavert et al., 2020). 방화빈도와 함께 단회 방문 후 암술머리 화분 침착량, 방문횟수별 화분관 신장을 함께 조사할 필요가 있다 (Garratt et al., 2016; Stavert et al., 2020).
기온, 상대습도 및 조도의 효과는 유의하지 않았다. 벌의 비행과 외역활동은 기상 요인의 영향을 받으며 그 반응은 벌 종류와 조사환경에 따라 달라지는데 (Corbet et al., 1993; Clarke and Robert, 2018), 배와 사과 과수원에서 양봉꿀벌이 서양뒤영벌보다 기상 변화에 민감하게 반응하였다는 보고가 있다 (Lee et al., 2016; Karbassioon et al., 2023). 본 연구에서 개별 기상 요인의 효과가 나타나지 않은 것은 조사 기간이 짧고 기상 범위가 제한적이었기 때문으로 보인다.
한편 두 벌 종류는 현장에서 이용되는 봉군의 규모가 서로 달라, 양봉꿀벌은 일벌 약 8,000마리, 서양뒤영벌은 약 200마리 규모의 봉군을 투입하였다. 개체 수를 동일하게 맞추어 비교하는 방법도 있으나, 실제 재배 현장에서는 봉군 단위로 벌을 투입하므로 본 연구는 현장에서 이용되는 봉군 규모를 그대로 적용하였다. 따라서 본 결과는 개체당 활동성의 차이가 아니라 봉군 단위에서 나타난 화분매개 활동성의 차이에 해당한다.
2. 벌 수분의 착과 효과
양봉꿀벌과 서양뒤영벌 수분구의 착과율은 인공수분구와 화분매개곤충 차단구보다 높았고, 차단구에서는 착과가 거의 이루어지지 않았다. 이는 자두 착과에 곤충에 의한 꽃가루 이동이 반드시 필요함을 보여주는 결과이다. 일본계 자두의 다수 품종은 배우체형 자가불화합성을 나타내므로 개화기가 일치하는 화합성 수분수와 화분매개곤충에 의한 교차수분이 요구되며 (Guerra and Rodrigo, 2015; Guerrero et al., 2020), 일본계 자두 과수원에서 방화횟수가 과실 수 및 수량과 밀접하게 관련된다는 보고도 있다 (Calzoni and Speranza, 1998). 벌수분 처리구의 착과율이 높았던 것은 개화기간 동안 이루어진 지속적인 방화가 화합성 꽃가루의 전달 기회를 늘렸기 때문으로 판단된다. 2026년에도 인공수분구의 착과율이 낮았는데, 인력을 이용한 제한적인 꽃가루 전달이 화분매개벌의 반복적인 방화를 대체하지 못하였거나, 꽃가루 제공 품종의 화합성, 꽃가루 활력, 처리시기와 횟수, 암술머리 수용성 등이 영향을 미쳤을 수 있다 (Guerrero et al., 2020). 그러나, 인공수분구의 낮은 착과율을 벌수분의 절대적 우수성으로만 해석하기는 어려우며, 인공수분을 대조처리로 이용할 때에는 꽃가루 제공 품종의 화합성과 활력을 확인하고 처리시기와 반복횟수를 표준화할 필요가 있다.
과실 특성에서는 과실 직경이 양봉꿀벌 수분구에서, 과실 경도가 서양뒤영벌 수분구에서 높았다. 그러나 본 시험포는 자두 유전자원 포장이어서 두 수분구에 동일한 품종이 공통으로 배치되지 않았으므로, 이를 벌 종류에 따른 수분 효과로 보기는 어렵다. 일본계 자두에서는 화분 제공 품종에 따라 착과율, 과실 크기, 과중, 경도 등이 달라지며 (Barzamini and Fotouhi Ghazvini, 2017; Deng et al., 2022), 조사나무 고유의 특성도 함께 작용하였을 수 있다.
이 등 (2011)은 망실 조건에서 양봉꿀벌, 서양뒤영벌 및 머리뿔가위벌 처리구 간 착과율이 비슷하였다고 보고하였으나, 본 연구의 노지 조건에서는 서양뒤영벌 수분구의 착과율이 양봉꿀벌 수분구보다 수치상 높았다. 경쟁 화원의 유무, 기상 변동의 범위, 봉군과 조사나무 사이의 거리 등 망실과 노지의 환경 차이가 작용하였을 것으로 보인다. 또한 두 연구는 조사 연도, 지역과 품종 구성이 다르므로 직접 비교하기는 어렵다.
3. 투입 봉군 수에 따른 화분매개 효과
660 m2에 6봉군을 배치한 시험장 (90.9봉군/ha)에서는 1,350 m2에 3봉군을 배치한 시험장 (22.2봉군/ha)보다 방화활동 벌 수와 서양뒤영벌 수분구의 추정 착과율이 모두 높게 관찰되었다. 다만 두 시험장은 면적과 품종 구성이 달라 이러한 차이를 면적당 봉군 밀도만의 효과로 해석하는 데에는 한계가 있다. 방화활동이 많았던 처리구에서 착과율도 높았다는 것은 개화기간 중 충분한 방화와 꽃가루 전달이 자두의 교차수분에 중요함을 시사하며, 자가불화합성 일본계 자두에서 방화량이 과실 수 및 수량과 관련된다는 보고와도 일치한다 (Calzoni and Speranza, 1998).
본 연구의 조사는 봉군으로부터 반경 10 m 이내에 한정되었다. 이 범위는 외역벌 밀도가 가장 높은 지점이므로 두 처리구 모두 방화 기회가 가장 유리한 조건에 해당한다. 그럼에도 3봉군 처리구의 추정 착과율은 3.86%에 그쳤고 화분매개곤충 차단구와의 차이도 유의수준에 이르지 못하였다. 약 1 ha 규모의 시험포장에서 3봉군 수준의 투입으로는 봉군 인접부에서조차 충분한 착과를 얻기 어려웠던 것으로 보인다. 반면 6봉군 처리구에서는 서양뒤영벌 수분구의 착과율이 인공수분구와 차단구보다 뚜렷하게 높았다.
방화활동의 증가가 화분 침착량이나 착과율, 수량의 비례적인 증가로 이어지는 것은 아니므로, 적정 투입 수준은 작물의 화분 요구량, 착과율, 수량, 과실 품질 및 봉군 상태를 함께 고려하여 결정해야 한다 (Ramírez-Mejía et al., 2024). 본 연구의 처리구를 시험구 면적으로 환산하면 6봉군 처리구와 3봉군 처리구는 각각 약 110 m2와 450 m2당 1봉군에 해당하나, 이는 봉군 근접부 조사 결과를 면적으로 환산한 참고값이며 시험포장 전체의 적정 밀도를 산출한 것은 아니다. 실제 적용 기준을 세우기 위해서는 봉군 투입비용과 생산 증가분을 반영한 경제성 평가도 함께 이루어져야 한다.
본 연구는 노지 자두에서 서양뒤영벌이 양봉꿀벌과 함께 화분매개곤충으로 이용될 수 있음을 보여주었다. 특히 서양뒤영벌은 2025년 망실 시험의 방화활동과 방화행동, 2025년 노지 시험의 착과율, 2026년 투입 봉군 수 시험의 방화활동과 착과율에서 모두 높은 활동을 보여, 서로 다른 세 자료에서 같은 경향이 반복되었다. 그동안 자두의 화분매개 연구가 망실 조건에 한정되어 있었던 점을 고려하면, 실제 재배환경과 동일한 노지 조건에서 벌 종류와 투입 봉군 수에 따른 차이를 함께 확인하였다는 데 의미가 있다.
이러한 결과는 자두 재배 현장에서 화분매개곤충을 도입할 때의 기초자료로 활용될 수 있다. 서양뒤영벌은 규격화된 봉군을 연중 공급받을 수 있어 개화기가 짧고 이른 봄에 개화하는 자두에 투입하기 유리하며, 본 연구에서 확인된 방화활동과 착과 반응은 투입 수준을 판단하는 근거가 될 수 있다. 특히 약 1 ha 규모의 시험포장에서 3봉군 처리구는 봉군 인접부에서조차 착과율이 낮았던 반면 6봉군 처리구에서는 뚜렷한 착과 효과가 나타나, 자두원에 서양뒤영벌을 도입할 때 봉군 수를 충분히 확보해야 함을 보여준다.
다만 본 연구에는 몇 가지 제한점이 있다. 단일 시험포장에서 처리별 봉군을 각각 한 지점에 배치하여 봉군 수준의 반복이 이루어지지 않았고, 조사 범위도 봉군 근접부에 한정되어 시험포장 전체의 착과 수준을 나타내지는 못한다. 또한 자두 유전자원 포장의 특성상 조사목의 공시품종이 처리구 간에 서로 달라 벌 종류의 효과와 품종의 효과를 분리하기 어려웠으며, 과실 특성은 조사목 내 하위표본을 분석 단위로 하였다. 따라서 본 연구의 결과는 시험에 투입된 특정 봉군과 시험포장 조건에서 얻어진 것으로, 벌 종류나 투입 봉군 수의 일반적인 효과로 확대하여 해석하기는 어렵다 (Oksanen, 2001; Davies and Gray, 2015).
앞으로는 봉군 수준의 반복을 확보하고 동일한 품종을 처리구에 공통으로 배치하며, 조사목을 포장 전체에서 무작위로 선정한 시험이 필요하다. 아울러 방화활동과 착과율뿐 아니라 단회 방문 후 암술머리 화분 침착량과 화분관 신장을 함께 조사하면 벌 종류에 따른 화분매개 효과를 보다 직접적으로 비교할 수 있을 것이다. 봉군 투입비용과 생산 증가분을 반영한 경제성 평가가 더해진다면, 자두 재배 현장에 적용할 수 있는 화분매개곤충 이용 기준을 제시할 수 있을 것으로 생각된다.
적 요
본 연구는 자두 (Prunus salicina Lindl.)에서 서양뒤영벌 (Bombus terrestris L.)의 화분매개곤충으로서의 적용 가능성을 양봉꿀벌 (Apis mellifera L.)과 비교하여 평가하고, 투입 봉군 수에 따른 방화활동과 착과 효과를 검토하기 위하여 2025년과 2026년에 수행하였다. 2025년 망실 시험에서 양봉꿀벌의 추정 소문 입·출입 수는 서양뒤영벌보다 2.98배 많았으나, 서양뒤영벌의 추정 방화활동 수는 양봉꿀벌보다 2.99배 높았다 (p<0.001). 총 방화소요시간은 서양뒤영벌이 8.48초로 양봉꿀벌의 11.54초보다 짧았다 (p=0.025). 노지 시험에서 착과율 중앙값은 서양뒤영벌 수분구 46.70%, 양봉꿀벌 수분구 17.45%, 인공수분구와 화분매개곤충 차단구는 각각 0.00%였으며, 두 벌 수분구의 착과율은 인공수분구 및 차단구보다 높았다 (p<0.001). 2026년 투입 봉군 수에 따른 비교에서는 6봉군 처리구가 3봉군 처리구보다 방화활동 수가 많았으며 (p<0.001), 서양뒤영벌 수분구의 추정 착과율도 각각 15.54%와 3.86%로 차이를 보였다. 이상의 결과는 서양뒤영벌이 자두꽃을 활발하게 방문하여 착과 향상에 기여할 수 있음을 보여주며, 자두 노지재배에서 화분매개곤충의 투입 수준을 판단하기 위한 기초자료로 활용될 수 있다. 다만 본 연구는 단일 시험포장에서 처리별 봉군을 각각 한 지점에 배치하고 봉군 근접부에 한정하여 조사하였으므로, 벌 종류나 투입 봉군 수의 일반적인 효과로 확대하여 해석하기는 어렵다.
Acknowledgments
본 연구의 실험 수행과 자료 수집에 도움을 주신 관계자분들께 감사드립니다. 본 연구는 농촌진흥청 연구사업의 지원을 받아 수행되었습니다 (과제번호: RS-2023-00232335).
References
- 국가통계포털 (KOSIS). 2024. 과실류 생산량 및 재배면적조사. 통계청.
- 농촌진흥청. 2018. 자두·매실. 개정2판. 농업기술길잡이 111. 농촌진흥청, 전주.
- 농촌진흥청. 2021. 화분매개곤충 이용 실태조사. 국립농업과학원, 전주.
- 농촌진흥청. 2025. 주요 과채류 화분매개곤충 기술적용 및 실증 연구보고서. 국립농업과학원, 전주.
- 이상범, 조재욱, 김원태, 박관호, 최영철, 이진근, 하남규, 김승렬. 2011. 자두 망사하우스에서 서양종꿀벌, 서양뒤영벌 그리고 머리뿔가위벌의 화분매개활동 특성. J. Apic. 26: 315-322.
- Barzamini, S. and R. Fotouhi Ghazvini. 2017. Pollinizer influence on fruit quality traits in Japanese plum (Prunus salicina Lindl.). Int. J. Hortic. Sci. Technol. 4(2): 229-237.
-
Brittain, W. H. 1933. Apple pollination studies in the Annapolis Valley, N.S., Canada, 1928-1932. Bulletin, New Series No. 162. Dominion of Canada, Department of Agriculture, Ottawa, Canada, 198 pp.
[https://doi.org/10.5962/bhl.title.63087]

-
Calzoni, G. L. and A. Speranza. 1998. Insect controlled pollination in Japanese plum (Prunus salicina Lindl.). Sci. Hortic. 72(3-4): 227-237.
[https://doi.org/10.1016/S0304-4238(97)00132-5]
-
Clarke, D. and D. Robert. 2018. Predictive modelling of honey bee foraging activity using local weather conditions. Apidologie 49(3): 386-396.
[https://doi.org/10.1007/s13592-018-0565-3]
-
Connell, J. H. 2000. Pollination of almonds: Practices and problems. HortTechnology 10(1): 116-119.
[https://doi.org/10.21273/HORTTECH.10.1.116]
-
Corbet, S. A., M. Fussell, R. Ake, A. Fraser, C. Gunson, A. Savage and K. Smith. 1993. Temperature and the pollinating activity of social bees. Ecol. Entomol. 18(1): 17-30.
[https://doi.org/10.1111/j.1365-2311.1993.tb01075.x]
-
Cunningham, S. A., A. Fournier, M. J. Neave and D. Le Feuvre. 2016. Improving spatial arrangement of honeybee colonies to avoid pollination shortfall and depressed fruit set. J. Appl. Ecol. 53(2): 350-359.
[https://doi.org/10.1111/1365-2664.12573]
-
Dag, A. 2008. Bee pollination of crop plants under environmental conditions unique to enclosures. J. Apic. Res. 47(2): 162-165.
[https://doi.org/10.1080/00218839.2008.11101444]
-
Davies, G. M. and A. Gray. 2015. Don’t let spurious accusations of pseudoreplication limit our ability to learn from natural experiments (and other messy kinds of ecological monitoring). Ecol. Evol. 5: 5295-5304.
[https://doi.org/10.1002/ece3.1782]
-
Degen, J., T. Hovestadt, M. Storms and R. Menzel. 2018. Exploratory behavior of re-orienting foragers differs from other flight patterns of honeybees. PLoS ONE 13(8): e0202171.
[https://doi.org/10.1371/journal.pone.0202171]
-
Delaplane, K. S. and D. F. Mayer. 2000. Crop Pollination by Bees. CABI Publishing, Wallingford, UK.
[https://doi.org/10.1079/9780851994482.0000]
-
Deng, L,. T. Wang, J. Hu, X. Yang, Y. Yao, Z. Jin, Z. Huang, G. Sun, B. Xiong, L. Liao and Z. Wang. 2022. Effects of pollen sources on fruit set and fruit characteristics of ‘Fengtangli’ plum (Prunus salicina Lindl.) based on microscopic and transcriptomic analysis. Int. J. Mol. Sci. 23(21): 12959.
[https://doi.org/10.3390/ijms232112959]
-
Garratt, M. P. D., T. D. Breeze, V. Boreux, M. T. Fountain, M. McKerchar, S. M. Webber, D. J. Coston, N. Jenner, R. Dean, D. B. Westbury, J. C. Biesmeijer and S. G. Potts. 2016. Apple pollination: Demand depends on variety and supply depends on pollinator identity. PLoS ONE 11(5): e0153889.
[https://doi.org/10.1371/journal.pone.0153889]
-
Guerra, M. E. and J. Rodrigo. 2015. Japanese plum pollination: A review. Sci. Hortic. 197: 674-686.
[https://doi.org/10.1016/j.scienta.2015.10.032]
-
Guerra-Sanz, J. M. 2008. Crop pollination in greenhouses. pp. 27-47. in Bee Pollination in Agricultural Ecosystems, eds. by James RR, Pitts-Singer TL, Oxford University Press, New York, NY, USA.
[https://doi.org/10.1093/acprof:oso/9780195316957.003.0003]
-
Guerrero, B. I., M. E. Guerra and J. Rodrigo. 2020. Establishing pollination requirements in Japanese plum by phenological monitoring, hand pollinations, fluorescence microscopy and molecular genotyping. J. Vis. Exp. 165: e61897.
[https://doi.org/10.3791/61897]
-
Hartmann, W. and M. Neumüller. 2009. Plum breeding. pp. 161-231. in Breeding Plantation Tree Crops: Temperate Species, eds. by P. M. Priyadarshan, S. M. Jain. Springer, New York, NY, USA.
[https://doi.org/10.1007/978-0-387-71203-1_6]
-
Huang, X., Y. Wang and L. Zheng 2025. Foraging behaviors and comparative yield effects of bumblebee (Bombus terrestris Linnaeus) and Chinese honeybee (Apis cerana cerana Fabricius) to cherry (Prunus pseudocerasus ‘Hongdeng’) in northern China. Insects 16(9): 900.
[https://doi.org/10.3390/insects16090900]
-
Karbassioon, A., J. Yearsley, T. Dirilgen, S. Hodge, J. C. Stout and D. A. Stanley. 2023. Responses in honeybee and bumblebee activity to changes in weather conditions. Oecologia 201: 689-701.
[https://doi.org/10.1007/s00442-023-05332-x]
- Kevan, P. G., W. A. Straver, M. Offer and T. M. Laverty. 1991. Pollination of greenhouse tomatoes by bumble bees in Ontario. Proc. Entomol. Soc. Ont. 122: 15-19.
-
King, C., G. Ballantyne and P. G. Willmer. 2013. Why flower visitation is a poor proxy for pollination: Measuring single-visit pollen deposition, with implications for pollination networks and conservation. Methods Ecol. Evol. 4(9): 811-818.
[https://doi.org/10.1111/2041-210X.12074]
-
Kline, O., N. T. Phan, M. F. Porras, J. Chavana, C. Z. Little, L. Stemet, R. S. Acharya, D. J. Biddinger, G. V. P. Reddy, E. G. Rajotte and N. K. Joshi. 2023. Biology, genetic diversity, and conservation of wild bees in tree fruit orchards. Biology 12(1): 31.
[https://doi.org/10.3390/biology12010031]
-
Kwon, J. H., J. H. Jun, E. Y. Nam, K. H. Chung, I. K. Yoon, S. K. Yun and S. J. Kim 2017. Selection of a suitable pollinizer for ‘Summer Fantasia’ plum. HortScience 52: 1182-1187.
[https://doi.org/10.21273/HORTSCI11967-17]
-
Lee, K. Y., S. H. Yim, H. J. Seo, S. Y. Kim and H. J. Yoon. 2016. Comparison of pollination activities between honeybee (Apis mellifera L.) and bumblebee (Bombus terrestris L.) during the flowering period of Asian pear (Pyrus pyrifolia N.) under variable weather conditions. J. Apic. 31(3): 247-261.
[https://doi.org/10.17519/apiculture.2016.09.31.3.247]
-
Millard, J., C. L. Outhwaite, S. Ceauşu, L. G. Carvalheiro, F. D. da Silva e Silva, L. V. Dicks, J. Ollerton and T. Newbold. 2023. Key tropical crops at risk from pollinator loss due to climate change and land use. Sci. Adv. 9(41): eadh0756.
[https://doi.org/10.1126/sciadv.adh0756]
-
Normandeau Bonneau, M., O. Samson-Robert, V. Fournier and G. Chouinard. 2021. Commercial bumble bee (Bombus impatiens) hives under exclusion netting systems for apple pollination in orchards. Renew. Agric. Food Syst. 36: 234-244.
[https://doi.org/10.1017/S1742170520000095]
-
Oksanen, L. 2001. Logic of experiments in ecology: Is pseudoreplication a pseudoissue? Oikos 94: 27-38.
[https://doi.org/10.1034/j.1600-0706.2001.11311.x]
-
Osborne, J. L., A. P. Martin, N. L. Carreck, J. L. Swain, M. E. Knight, D. Goulson, R. J. Hale and R. A. Sanderson. 2008. Bumblebee flight distances in relation to the forage landscape. J. Anim. Ecol. 77: 406-415.
[https://doi.org/10.1111/j.1365-2656.2007.01333.x]
-
Papa, G., R. Maier, A. Durazzo, M. Lucarini, I. K., Karabagias, M. Plutino, E. Bianchetto, R. Aromolo, G. Pignatti, A. Ambrogio, M. Pellecchia and I. Negri. 2022. The honey bee Apis mellifera: An insect at the interface between human and ecosystem health. Biology 11(2): 233.
[https://doi.org/10.3390/biology11020233]
-
Potts, S. G., J. C. Biesmeijer, C. Kremen, P. Neumann, O. Schweiger and W. E. Kunin. 2010. Global pollinator declines: Trends, impacts and drivers. Trends Ecol. Evol. 25(6): 345-353.
[https://doi.org/10.1016/j.tree.2010.01.007]
-
Ramírez-Mejía, A. F., N. P. Chacoff, P. Cavigliasso and P. G. Blendinger. 2024. How much is enough? Optimizing beehive stocking densities to maximize the production of a pollinator-dependent crop. Ecol. Model. 498: 110891.
[https://doi.org/10.1016/j.ecolmodel.2024.110891]
-
Sapir, G., M. Goldway, S. Shafir and R. A. Stern. 2007. Multiple introduction of honeybee colonies increases cross-pollination, fruit-set and yield of ‘Black Diamond’ Japanese plum (Prunus salicina Lindl.). J. Hortic. Sci. Biotechnol. 82(4): 590-596.
[https://doi.org/10.1080/14620316.2007.11512278]
-
Sapir, G., R. A. Stern, S. Shafir and M. Goldway. 2008. Full compatibility is superior to semi-compatibility for fruit set in Japanese plum (Prunus salicina Lindl.) cultivars. Sci. Hortic. 116(4): 394-398.
[https://doi.org/10.1016/j.scienta.2008.02.018]
-
Schmid-Hempel, P., A. Kacelnik and A. I. Houston. 1985. Honeybees maximize efficiency by not filling their crop. Behav. Ecol. Sociobiol. 17: 61-66.
[https://doi.org/10.1007/BF00299430]
-
Sedgley, M. and A. R. Griffin. 1989. Sexual Reproduction of Tree Crops. Academic Press, London, UK, 378 pp.
[https://doi.org/10.1016/B978-0-12-634470-7.50006-4]
-
Stavert, J. R., C. Bailey, L. Kirkland and R. Rader. 2020. Pollen tube growth from multiple pollinator visits more accurately quantifies pollinator performance and plant reproduction. Sci. Rep. 10: 16958.
[https://doi.org/10.1038/s41598-020-73637-5]
-
Vicens, N. and J. Bosch. 2000. Weather-dependent pollinator activity in an apple orchard, with special reference to Osmia cornuta and Apis mellifera (Hymenoptera: Megachilidae and Apidae). Environ. Entomol. 29(3): 413-420.
[https://doi.org/10.1603/0046-225X-29.3.413]
- von Frisch, K. 1967. The Dance Language and Orientation of Bees. Harvard University Press, Cambridge, MA, USA.
- Winston, M. L. 1987. The Biology of the Honey Bee. Harvard University Press, Cambridge, MA, USA.
-
Woodcock, B. A., M. Edwards, J. Redhead, W. R. Meek, P. Nuttall, S. Falk, M. Nowakowski and R. F. Pywell. 2013. Crop flower visitation by honeybees, bumblebees and solitary bees: Behavioural differences and diversity responses to landscape. Agric. Ecosyst. Environ. 171: 1-8.
[https://doi.org/10.1016/j.agee.2013.03.005]
-
Zhang, H., J. Huang, P. H. Williams, B. E. Vaissière, Z. Zhou, Q. Gai, J. Dong and J. An. 2015. Managed bumblebees outperform honeybees in increasing peach fruit set in China: Different limiting processes with different pollinators. PLoS ONE 10(3): e0121143.
[https://doi.org/10.1371/journal.pone.0121143]
-
Zisovich, A. H., M. Goldway, D. Schneider, S. Steinberg, E. Stern and R. A. Stern. 2012. Adding bumblebees (Bombus terrestris L., Hymenoptera: Apidae) to pear orchards increases seed number per fruit, fruit set, fruit size and yield. J. Hortic. Sci. Biotechnol. 87: 353-359.
[https://doi.org/10.1080/14620316.2012.11512876]