황칠나무의 화밀 특성 및 잠재 꿀 생산량 분석
Abstract
This study evaluated the potential of Dendropanax trifidus (Thunb.) Makino ex H.Hara as a honey plant by analyzing its growth and flowering characteristics, nectar traits, and honey yield potential. Nine trees had a mean height of 4.5±0.5 m, root collar diameter of 9.0±2.1 cm, crown width of 3.2±0.5 m, and 6,008±3,526 flowers per tree. Nectar secretion not detected in the morning (10 AM) but was present in the afternoon (15 PM) on both day 1 and day 2. Nectar volume was 5.25±0.97 and 2.32±1.11 μL/flower on days 1 and 2 after anthesis, respectively, with a total nectar volume of 7.57±2.08 μL/flower. Nectar sugar content per flower was 1.76 mg, and honey yield potential was estimated at 12.1±5.4 kg/ha based on growth and flowering characteristics. The nectar exhibited a hexose-dominant sugar profile, with fructose and glucose as the predominant sugars, while phenylalanine accounted for 65.9% of the total amino acid content. Overall, considering its flowering period, nectar production, and nutritional composition, D. trifidus has potential as a supplementary honey plant for enhancing floral resources during late summer.
Keywords:
Dendropanax, Nectar volume, Free sugar, Amino acids, Honey yield, Nectar source plant서 론
국내 양봉산업은 지속적으로 성장해 왔으나 천연꿀 생산량은 연도별 변동 폭이 크게 나타나는 경향을 보이는데, 이러한 원인은 국내 주요 밀원수종인 아까시나무의 면적과 개체 수 감소, 기후변화에 따른 개화 불량과 채밀 여건 악화, 밀원자원의 부족 등이 복합적으로 작용한 결과로 지적된다 (Park et al., 2025a). 특히 일부 수종에 대한 의존도가 높은 채밀 구조에서는 개화시기나 개화량의 변화 및 이상기후가 꿀 생산량에 직접적인 영향을 줄 수 있기 때문에 벌꿀 생산의 안정성을 높이기 위해 기존 밀원수종을 유지·확대하면서 서로 다른 시기에 개화하는 신규·보조 밀원수종을 지속적으로 발굴할 필요가 있다 (Park et al., 2025b).
밀원식물은 화분과 벌꿀 등 양봉산물 생산의 기반이 될 뿐 아니라 꿀벌의 생존과 군집 유지에 필요한 먹이자원을 제공한다. 화밀에 포함된 당은 꿀벌의 비행과 채집활동에 필요한 에너지원으로 이용되며, 화분은 단백질과 지질을 포함한 다양한 영양성분을 공급한다 (Vaudo et al., 2015). 또한 개화시기가 서로 다른 식물이 연속적으로 화분과 화밀을 공급해 주면 먹이자원의 계절적 공백을 줄일 수 있으며 화분매개곤충의 활동을 안정적으로 유지할 수 있다 (Timberlake et al., 2019). 따라서 새로운 수종을 밀원자원으로 활용하기 위해서는 개화기간과 개화량, 화밀 분비량, 유리당 함량 및 잠재적 꿀 생산량을 정량적으로 파악해야 한다 (Tew et al., 2021).
이러한 관점에서 주요 봄철 밀원수종의 개화가 끝난 이후에도 꿀벌에게 먹이자원을 제공할 수 있는 수종에 주목할 필요가 있다. 황칠나무 (Dendropanax trifidus (Thunb.) Makino ex H.Hara)는 두릅나무과에 속하는 난대성 상록활엽수로, 우리나라 남부 해안과 도서지역에 분포하며 주로 8~9월에 개화한다 (Kim et al., 2015). 황칠나무 칠액은 전통적으로 천연도료로 이용되어 왔으며, 잎, 줄기 등에 포함된 생리활성 성분으로 인해 기능성 소재로도 활용 가치가 높은 수종이다 (Balakrishnan et al., 2020). 또한 산림청에서 지원하는 임산물 소득원 중 약용식물로 분류되어 생산되고 있으며, 2022년 기준 국내 임산물 생산량은 784 t, 생산액 106억 원에 달하는 수종으로 주산지는 전남지역에 집중되어 있다 (전라남도, 2022). 이와 같이 황칠나무는 약용식물로서의 지역적 생산 기반이 마련되어 있는 가운데 밀원자원으로서 이용 가능성 또한 보고된 바 있다. 선행 연구에 따르면 황칠나무 꽃을 방문한 곤충 가운데 서양종꿀벌 (Apis mellifera)이 69%를 차지하였고, 개화지당 1일 방문 수가 약 47.3마리로 추정되어 황칠나무 꽃이 실제 꿀벌의 먹이자원으로 이용될 가능성이 보고되었다 (Kim et al., 2015). 또한 황칠나무는 양봉산업의 육성 및 지원에 관한 법률 시행규칙 제2조에서 목본 밀원식물의 범위에 포함되어 있다 (농림축산식품부, 2020).
밀원식물의 정확한 가치 평가 및 수종 간 비교를 위해서는 화밀 분비량의 단순 비교에 그쳐선 안되며, 꽃당 유리당 함량과 개체별 개화량, 식재밀도 등을 종합적으로 반영한 단위면적당 잠재 꿀 생산량으로 비교해야 한다 (Na et al., 2025). 그러나 기존의 황칠나무의 화밀 특성에 관한 연구는 일부 조사목을 대상으로 곤충 방문과 꽃당 화밀 분비량 및 화밀 성분을 조사하여 밀원수종으로서의 가능성을 제시한 수준으로, 개체별 개화량과 식재밀도를 반영한 단위면적당 잠재적 꿀 생산량 평가는 이루어지지 않아 수종 간 비교에 한계가 있다 (Kim et al., 2015). 이에 본 연구에서는 국내에서 통상적으로 활용되는 밀원가치 평가 매뉴얼에 따라 황칠나무의 생육 및 개화 특성, 시간대에 따른 화밀 분비 특성을 조사하고, 이를 바탕으로 단위면적당 잠재 꿀 생산량을 추정하였으며, 화밀 내 유리당 조성과 아미노산 함량 등 영양학적 고찰을 통해 밀원수로서의 활용 가능성을 종합적으로 평가하고자 하였다 (Kim et al., 2022a).
재료 및 방법
1. 조사지 및 생육·개화 특성 조사
본 연구는 전라남도 나주시에 위치한 전라남도산림연구원 내 황칠나무 조림지에서 주변 수목에 의해 피압되거나 병충해 피해를 받은 개체를 제외하고 생육상태가 양호한 황칠나무 9본을 선정하여 조사하였다. 생육 특성은 수고자, 직경테이프 및 줄자를 이용하여 조사목별 수고 (m), 근원경 (cm) 및 수관폭을 측정하였다. 수관폭은 수관의 장축과 단축을 각각 측정한 후 평균값으로 산출하였다. 개화기간은 개체 내 누적 개화율이 5% 이상 되는 시점을 개화일, 누적 개화율 95% 이상이면서 대부분의 꽃이 탈락하는 시점을 종료일로 구분하였다. 개화 특성을 조사하기 위해 각 조사목에 형성된 화서 수를 육안으로 전수조사하였으며, 조사목별로 15개 이상의 화서를 임의로 선정하여 화서당 꽃 수를 조사하였다. 본당 꽃 수는 본당 화서 수에 조사목의 평균 화서당 꽃 수를 곱하여 산출하였다.
2. 화밀 분비 특성 조사
황칠나무의 화밀 분비는 꽃이 개화한 후 활력이 유지되는 기간을 고려하여 개화 1일차와 2일차로 구분하였으며, 8월 20일부터 8월 21일까지 2일간 수행하였다. 공시목 3본을 대상으로 외부 화분매개곤충에 의한 화밀 손실을 방지하기 위해 조사 하루 전 화서에 교배봉투를 설치하였으며, 조사 당일 새롭게 개화한 꽃 83개를 대상으로 화밀을 수집하였다. 화밀 수집은 개화 1일차와 2일차에 각각 오전 (10:00)과 오후 (15:00)로 구분하여 개화시작부터 탈락까지 3 μL capillary tube를 이용하여 반복 수집한 뒤, 수집된 화밀의 tube 내 길이와 부피비를 이용하여 꽃당 화밀량을 정량하였고, 이를 이용하여 꽃당 총 화밀량을 산출하였다 (Corbet, 2003; Kim et al., 2022a).
3. 유리당 및 아미노산 함량 분석
채취한 화밀은 원심분리기 (VS-5500I, Vision Scientific Co., Ltd., Korea)를 이용하여 capillary tube에서 회수한 후 유리당과 아미노산 분석에 이용하였다. 이후 화밀량의 10배에 해당하는 80% 에탄올 (v/v)을 첨가하였으며, 0.45 μm centrifugal filter를 이용하여 정제하였다.
유리당 분석은 HPLC (Dionex Ultimate 3000, Dionex, USA)를 이용하였으며, 이동상으로 3차 증류수를 사용하여 유속 0.5 mL/min, 온도 80℃의 조건에서 분석하였다. 표준 물질로는 sucrose, glucose 및 fructose (Sigma-Aldrich, USA)를 사용하였으며, Aminex 87P column (Bio-Rad, USA)과 RI-101 detector (Shodex, Japan)를 이용하여 검출한 후 적분계에 의한 외부표준법으로 계산하였다 (Linear regression equation, R2>0.999).
아미노산은 화밀 시료를 O-phthalaldehyde (OPA)-fluorenylmethyl chloroformate (FMOC) 유도체화한 후 HPLC (1200 series, Agilent Technologies, USA)를 이용하여 분석하였다. 이동상은 10 mM Na2HPO4와 10 mM Na2B4O7·10H2O가 포함된 A용액 (pH 8.2)과 water : acetonitrile:methanol을 10 : 45 : 45 비율로 혼합한 B용액을 사용하였으며, 분석을 통해 개별 아미노산 및 총 아미노산 함량을 산출하였다 (Park et al., 2025b).
4. 꿀 생산량 추정
황칠나무의 잠재적 꿀 생산량은 꽃당 유리당 함량과 본당 개화량을 이용하여 산출하였다. 개화 1일차와 2일차에 조사된 꽃당 화밀량과 단위용량당 유리당 함량을 곱하여 각 개화일의 꽃당 유리당 함량을 계산하였으며, 두 개화일의 값을 합산하여 꽃당 총 유리당 함량을 계산하였다. 이후 본당 꽃 수와 honey potential을 적용하여 본당 잠재적 꿀 생산량을 추정하였다. Petanidou (2003)가 제시한 honey potential 1.15를 사용하였으며, 계산 방법은 기존 밀원식물의 꿀 생산량 평가 방법을 사용하였다 (Kim et al., 2021a, 2021b, 2022a; Na et al., 2024; Park et al., 2025b). 단위면적당 잠재 꿀 생산량은 조사목별 수관폭을 이용하여 개체별 ha당 생육 가능 본 수를 산출한 후, 각 조사목의 본당 잠재 꿀 생산량에 적용하여 계산하였다. 최종 ha당 잠재 꿀 생산량은 조사목 9본에서 산출된 개체별 추정값의 평균±표준편차로 나타냈다.
- • 꽃당 유리당 함량 (mg/flower)
- = 꽃당 화밀량 (μL/flower)×단위 용량당 유리당 함량 (μg/μL)×0.001 (μg convert to mg)
- • 꽃당 총 유리당 함량 (mg/flower)
- = 개화 1일차 꽃당 유리당 함량+개화 2일차 꽃당 유리당 함량
- • 본당 잠재적 꿀 생산량 (g/tree)
- = 꽃당 총 유리당 함량×본당 개화량×1.15×0.001 (mg convert to g)
- • ha당 생육 가능 본 수 (trees/ha)
- =10,000 / (평균 수관폭×평균 수관폭)
- • ha당 잠재 꿀 생산량 (kg/ha)
- = 본당 잠재적 꿀 생산량×ha당 생육 가능 본 수×0.001 (g convert to kg)
5. 통계분석
모든 측정값은 평균±표준편차 (mean±SD)로 나타냈다. 개화 1일차와 2일차 간 화밀 분비량 및 유리당 함량의 차이는 독립표본 t-test를 이용하여 분석하였다. 아미노산 함량 및 조성은 적은 샘플 수 (n=4)를 고려하여 개화일 간 차이는 비모수 검정인 Mann-Whitney U-test를 이용하여 분석하였다. 모든 통계분석의 유의수준은 p<0.05로 설정하였으며, 통계분석은 IBM SPSS Statistics 27 (IBM Corp., Armonk, NY, USA)을 이용하여 수행하였다.
결 과
1. 생장 및 개화 특성
조사목 9본을 대상으로 조사한 결과, 평균 수고는 4.5±0.5 m, 근원경은 9.0±2.1 cm, 수관폭은 3.2±0.5 m로 나타났다. 황칠나무의 개화는 2025년 8월 9일에 시작되어 8월 25일에 종료되었으며, 전체 개화기간은 약 17일이었다. 본당 화서 수는 평균 223.9±127.4개였으며, 화서당 꽃 수는 27.4±6.1개로 조사되었다. 이를 바탕으로 산출된 본당 꽃 수는 평균 6,008±3,526개였으며, 개체 간 개화량의 차이가 비교적 크게 나타났다 (Table 1). 황칠나무의 화서는 우산모양꽃차례로 가지 끝에 1개씩 달리며 차단망이 설치된 꽃에서 다량의 화밀이 분비되는 모습을 확인할 수 있었다 (Fig. 1).

Growth and flowering characteristics of the surveyed D. trifidus
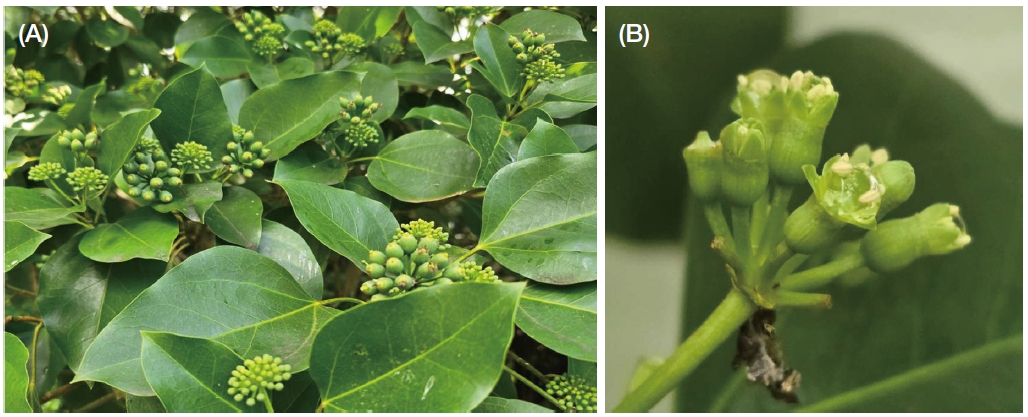
Inflorescences and flowers of D. trifidus. (A) Inflorescences on branches and (B) nectar secretion from a flower.
2. 화밀 분비량
개화일과 조사시간에 따른 꽃당 화밀 분비량을 조사한 결과, 개화 1일차와 2일차 모두 오전에는 화밀이 분비되지 않았으며, 오후 3시에 화밀이 확인되었다. 오후 시간대의 화밀 분비량은 개화 1일차에 5.25±0.97 μL/flower, 개화 2일차에 2.32±1.11 μL/flower로 조사되었고, 개화 3일차에는 대부분의 꽃이 활력을 잃고 탈락하여 2일간 화밀 분비가 지속됨을 확인하였다. t-test를 이용하여 개화 일자 간 화밀 분비량을 비교한 결과 유의한 차이가 인정되어 1일차에서 보다 많은 화밀이 분비되었다 (t=7.019, p<0.001). 개화 1일차, 2일차의 화밀 분비량을 합산한 꽃 하나당 총 화밀 분비량은 7.57±2.08 μL/flower로 산출되었다 (Fig. 2).
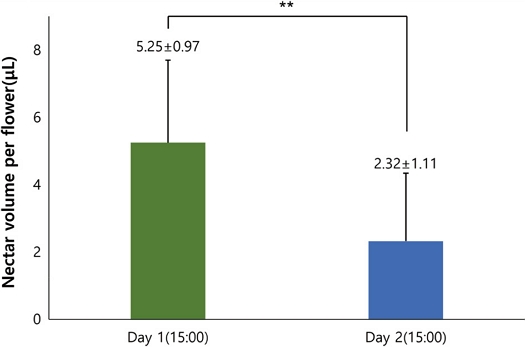
Nectar volume per flower at 15:00 on days 1 and 2 after anthesis in D. trifidus. Values are means±SD. **indicates a significant difference between day 1 and day 2 (t=7.019, p<0.001)
3. 유리당 함량 및 조성
황칠나무의 화밀 내 유리당 함량을 분석한 결과, 총 유리당 함량은 개화 1일차에 236.0±67.7 μg/μL, 개화 2일차에 254.1±76.8 μg/μL로 유사한 함량을 나타냈으며, 일자 간 유의한 차이는 없었다 (t-test, p>0.05). 유리당 조성은 과당이 1일차 59.1%, 2일차 65.4%로 가장 높게 나타났으며, 포도당 1일차 39.8%, 2일차 33.5%로 확인되었다. 자당은 1일차 1.1%, 2일차 1.0%로 가장 적게 함유된 것으로 조사되었으며 (Fig. 3), 일자별 항목 간에도 유의한 차이는 인정되지 않았다 (t-test, p>0.05). 요약하면 황칠나무 화밀은 과당과 포도당이 전체 유리당 중 99% 이상을 차지하였으며, 자당의 함량이 극히 적게 검출되어 Sucrose to hexose ratio (S/H ratio) 등급은 Hexose dominant로 분류되었다.
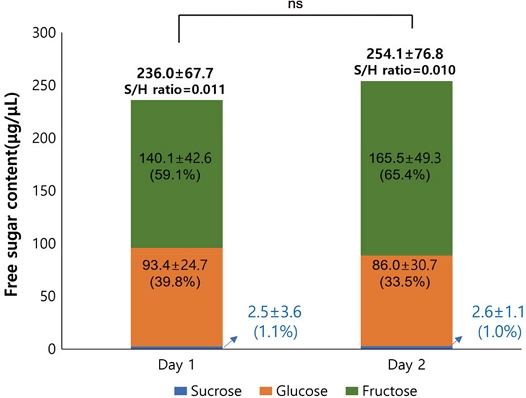
Free sugar contents in floral nectar of D. trifidus on days 1 and 2 after anthesis. Values are means±SD. ns indicates no significant difference between day 1 and day 2 for each sugar (p>0.05). The S/H ratio represents the ratio of sucrose to total hexose (glucose+fructose).
4. 아미노산 함량 및 조성
황칠나무 화밀 내 아미노산 조성을 분석한 결과, 총 14종의 아미노산이 검출되었으며 아르기닌 (Arginine), 히스티딘 (Histidine), 라이신 (Lysine), 메티오닌 (Methionine), 트립토판 (Tryptophan), GABA는 검출되지 않았다 (Table 2). 단위용량당 총 아미노산 함량은 평균 개화 1일차 439.0±80.3 mg/L, 개화 2일차 551.4±49.2 mg/L로 조사되었으며, 일자 간 유의성은 없었다 (Mann-Whitney U test, p>0.05). 전체 아미노산 중 필수 아미노산 (essential amino acids, EAA)은 70.1%, 비필수 아미노산 (non-essential amino acids, NEAA)은 29.9%로 나타났다. 필수 아미노산인 페닐알라닌 (Phenylalanine)이 평균 324.9 mg/L로 전체 아미노산의 65.9%를 차지하여 가장 높은 함량을 보였으며, 프롤린 (Proline)은 56.1 mg/L (10.8%), 글루타민 (Glutamine) 30.2 mg/L (6.2%), 세린 (Serine) 18.9 mg/L (3.8%) 및 아스파라긴 (Asparagine) 12.2 mg/L (2.4%) 순으로 확인되었다. 페닐알라닌은 개화 1일차와 2일차 각각 307.2±76.4 mg/L와 342.6±90.3 mg/L로 두 개화일 모두 가장 높은 함량을 나타내어 우점하는 아미노산으로 확인되었다. 개화 1일차와 2일차의 아미노산 함량을 Mann-Whitney U 검정으로 비교한 결과, 총 아미노산의 함량과 개별 아미노산에서 유의한 차이를 보이지 않았다 (p>0.05).
Amino acid content and composition of the floral nectar of D. trifidus on days 1 and 2 after anthesis
5. 잠재적 꿀 생산량 추정
황칠나무의 개화기간 동안 꽃 하나에서 생산된 총 유리당 함량 (1.76 mg/flower)과 개체별 꽃 수 (2,709~14,404개) 및 honey potential (1.15)을 고려하여 본당 잠재적 꿀 생산량을 계산한 결과, 평균 12.2±7.1 g/tree로 나타났다. 또한 각 조사목의 평균 수관폭을 고려하여 ha당 잠재 꿀 생산량을 추정한 결과 평균 12.1±5.4 (range 7.0~21.8) kg/ha로 추정되었다 (Table 3).
Honey yield potential of D. trifidus based on nectar and flowering characteristics
고 찰
1. 화밀 분비 특성
본 연구에서 황칠나무의 개화는 8월 중순부터 약 17일간 지속되어 주요 밀원수종의 개화가 종료되는 늦여름의 밀원 공백을 보완할 가능성을 보여주었다. 기존 연구에서도 황칠나무 집단 전체의 개화기간은 약 23일이었으며, 개별 조사목은 약 15일간 개화하여 본 연구와 유사한 경향을 나타냈다 (Kim et al., 2015). Timberlake et al. (2019)은 계절에 따른 화밀 공급량과 화분매개자의 화밀 수요를 비교한 결과, 초봄과 늦여름에 화밀 공급이 부족해질 수 있으며 이러한 시기에 개화하는 식물이 화분매개자의 먹이자원을 제공할 수 있다고 제시하였다. 또한, 꿀벌의 영양 균형 유지와 장기적인 생존을 위해서는 단일 고생산성 밀원수종에 의존하기보다는 개화시기가 분산된 다양한 저·중생산성 수종이 복합적으로 구성된 자원 환경이 보다 효과적이라는 점을 강조하고 있다 (Ghazoul, 2006; Lazaro et al., 2009; Na et al., 2024). 이를 고려할 때, 밀원식물의 가치는 화밀 생산량이나 잠재 꿀 생산량뿐만 아니라 화밀이 공급되는 시기에 따라서도 달라질 수 있음을 시사한다. 따라서 황칠나무는 단기간에 많은 양의 꿀을 생산하는 주요 밀원수종의 개화가 끝난 이후 화밀 공급을 이어주는 보조 밀원수종으로서 활용 가능한 것으로 판단된다. 다만 이러한 기능을 구체적으로 평가하기 위해서는 같은 시기에 개화하는 식물의 종류와 개화량을 조사하고 지역 전체의 늦여름 화밀 공급량 중 황칠나무가 차지하는 비중을 확인할 필요가 있다 (Kim et al., 2015; Timberlake et al., 2019).
본 연구 결과 황칠나무 화밀은 개화 1일차와 2일차 모두 오전 (10시)에 검출되지 않았으며 오후 (15시)에만 확인되었다. 이는 화밀 분비가 10시 이후에 시작되었다는 것을 의미한다. 그러나 특정 시점의 화밀량은 새롭게 분비된 양뿐만 아니라 꽃에 남아있던 화밀의 축적, 수분 증발 및 식물체의 재흡수가 함께 반영된 값이므로 (Corbet, 2003), 황칠나무가 일반적으로 오후에만 화밀을 분비한다고 단정하기에는 어렵다. 기존 황칠나무 연구에서는 오전과 오후 모두 화밀이 채취되었으나, 개화일과 조사시간에 따른 일정한 분비 경향은 보이지 않았다 (Kim et al., 2015). 반면 매실나무에서는 꽃이 유지되는 동안 분비된 전체 화밀의 84.1%가 오전에 분비되었으며 (Kim et al., 2021a), 동백나무에서도 전체 화밀의 93.4%가 오전에 분비되어 특정 시점에 화밀 분비가 집중되는 경향을 나타냈다 (Kim et al., 2021b). 이러한 화밀 분비는 수종에 따른 차이뿐만 아니라 꽃의 발달 단계와 온도 등의 환경 조건에 의해서도 달라질 수 있으며 (Pacini et al., 2003), 고온 조건에서 화밀량과 당 생산량이 감소하는 현상도 보고되었다 (Takkis et al., 2018). 따라서 본 연구에서 나타난 오후에 화밀 분비가 집중되는 현상은 황칠나무의 일중 화밀 분비 특성과 조사 당시의 환경 조건이 복합적으로 반영된 결과로 판단된다.
2. 화밀 품질 평가
황칠나무 화밀의 유리당은 과당과 포도당이 우점하고 자당은 1.0~1.1%로 매우 낮은 hexose-dominant 그룹으로 나타나 국내 조사된 여러 밀원수종과 차이를 보였다. 동백나무의 경우 자당이 전체 유리당의 94.3±5.7%를 차지하였고 (Kim et al., 2021b), 국내 조경수 8종의 화밀 조성을 비교한 결과 7종이 자당 우점형으로 분류되어 (Na et al., 2025), 황칠나무의 유리당 조성과는 구별되었다. 주요 밀원수종인 밤나무류에서는 황칠나무와 유사하게 과당·포도당 중심의 화밀 조성이 보고된 바 있다. Kim et al. (2020)은 밤나무류 (Castanea spp.)의 S/H ratio가 0.02~0.17 범위로 나타나 hexose-dominant로 분류된다고 보고하였다. 특히 한국 밤나무 품종 중 ‘미풍’은 S/H ratio가 0.04로 황칠나무와 유사한 당 조성 특성을 나타냈으며, 개화가 진행됨에 따라 자당이 과당과 포도당으로 전환되는 경향이 있어 hexose-dominant의 조성이 주요 밀원수종에서도 나타날 수 있음을 보여준다 (Park et al., 2025c). 한편 꿀벌은 자당뿐만 아니라 포도당과 과당에 모두 반응한다고 알려져 (Ali et al., 2021), 낮은 자당 함량만으로 황칠나무 화밀의 밀원가치를 낮게 평가하기는 어렵다.
다만 이러한 당류 구성의 차이는 화밀 전체의 당 생산량을 직접적으로 나타내는 것은 아니므로 유리당 조성과 꽃당 총 유리당 함량을 구분하여 해석할 필요가 있다. 본 연구에서 황칠나무의 꽃당 총 유리당 함량은 1.76 mg으로 나타났으며, 이는 국내 주요 밀원수종인 아까시나무에서 보고된 1.5~1.8 mg/flower와 유사한 수준이었다 (Park et al., 2025a). 따라서 황칠나무는 자당 우점형 화밀을 나타내지는 않았지만, 꽃 하나당 제공하는 전체 당량은 주요 밀원수종과 비교하여 보았을 때 양호한 수준인 것으로 판단된다. 이러한 결과는 황칠나무의 밀원가치를 특정 당류의 함량이나 구성비만으로 판단하기보다 꽃당 총 유리당 함량 등을 고려하여 종합적으로 해석할 필요가 있음을 시사한다. 또한 꽃당 총 유리당 함량은 ha당 잠재 꿀 생산량을 추정하는 기초 값이므로, 본 연구의 유리당 분석은 황칠나무 화밀의 조성과 특성을 밝히는 동시에 잠재적 생산성을 평가하기 위한 핵심 자료로서 의미가 있다.
황칠나무 화밀의 아미노산 조성에서는 페닐알라닌 (Phenylalanine)이 가장 높은 비율을 차지하였으며, 프롤린 (Proline)도 비교적 높게 나타났다. 기존 황칠나무 연구에서도 페닐알라닌이 전체 아미노산의 67.2%를 차지하고, 글루타민과 프롤린이 다음으로 높은 비율을 나타내어 본 연구와 유사한 경향이 확인되었다 (Kim et al., 2015). 본 연구와 선행 연구 모두 페닐알라닌이 공통적으로 우점한 것은 이 조성이 비교적 황칠나무 화밀의 일관된 특성일 가능성을 보여준다. 한편, 국내 조경수 8종의 화밀 아미노산 조성을 비교한 결과 수종에 따라 프롤린, 아스파라긴, 세린 등의 서로 다른 아미노산이 높게 나타났으며 페닐알라닌은 주요 성분으로 검출되지 않아 황칠나무와의 아미노산 조성과 차이를 나타냈다 (Na et al., 2025). 화밀 내 아미노산의 함량과 조성은 화분매개곤충의 화밀 선택에 영향을 미칠 수 있으며, 아미노산에 따라 꿀벌의 섭식 반응이 다르게 나타날 수 있다 (Petanidou et al., 2006). Hendriksma et al. (2014)은 자유롭게 이동하는 꿀벌을 대상으로 한 실험에서 필수 아미노산에 대한 선호가 나타났으며, 특히 페닐알라닌이 강한 섭식 유인 효과를 나타낸다고 보고하였다. 또한 Bertazzini et al. (2010)은 꿀벌이 프롤린이 첨가된 인공화밀을 당만 포함된 용액보다 선호하였으며, 프롤린이 알라닌 (Alanine) 및 세린 (Serine)보다 높은 섭식 선호를 유도한다고 보고하였다. 따라서 황칠나무의 페닐알라닌과 프롤린의 높은 함량은 수종 고유의 아미노산 조성으로 볼 수 있으며, 꿀벌의 유인에 긍정적인 요소로 판단된다. 다만 본 연구에서는 꿀벌의 실제 방문 빈도와 채집활동을 조사하지 않았으므로, 화밀의 아미노산 조성이 꿀벌의 방화 및 화밀 선택과 어떠한 관련성을 갖는지 직접적으로 해석하는 데에는 한계가 있다. 그러나 선행 연구에 따르면 개화지당 1일 방문 수가 약 47.3마리로 보고된 것은 황칠나무가 꿀벌의 먹이자원으로서 이용 가능성이 있음을 의미하며, 13~14시에 꿀벌의 방화가 집중된다는 결과는 본 연구에서 오후에 화밀 분비가 집중되는 것과 관련된 현상으로 판단된다 (Kim et al., 2015). 다만 화밀분비 특성, 유리당 함량 및 아미노산 조성과 화분매개자 간의 관계를 정확히 파악하기 위해서는 향후 개화기간 동안 꿀벌의 방문 빈도와 방문 시간대, 채집활동 유형을 조사하여 관련성을 확인할 필요가 있다.
3. 꿀 생산성 평가
밀원식물의 잠재 꿀 생산량에 영향을 미치는 요인은 화밀 분비량과 꽃당 유리당 함량, 본당 개화량, 식재밀도 등으로 수종 간 비교를 위해서는 모든 변수들을 반영하여 산출된 단위면적당 잠재 꿀 생산량으로 비교해야 한다 (Kim et al., 2021b; Park et al., 2025a). 본 연구에서 황칠나무의 잠재 꿀 생산량은 ha당 12.1±5.4 kg으로 추정되었다. 이는 동일한 방법으로 산출된 광나무 120.4 kg/ha, 아왜나무 125.4 kg/ha, 아까시나무 22.6~37.6 kg/ha, 쥐똥나무 46.1 kg/ha보다 낮은 수준으로 황칠나무는 단위면적당 대량 채밀을 위한 주요 밀원수종으로 활용하는 데 다소 한계가 있음을 보여준다 (Kim et al., 2022b; Park et al., 2025a, 2025b). 꽃당 총 유리당 함량은 1.76 mg/flower로 아까시나무 1.8 mg/flower와 비슷하지만 ha당 생산량이 상대적으로 낮게 추정된 것은 단위면적당 꿀 생산량이 꽃당 당량뿐만 아니라 개체당 꽃 수와 식재밀도가 복합적으로 영향을 미친 결과로 해석된다. 또한 황칠나무의 본당 잠재 꿀 생산량의 범위는 7.0~21.8 kg/ha로 표준편차가 크게 나타났는데, 이는 조사목별 꽃 수의 변이가 크게 나타나 최종 추정치에 반영되었음을 나타낸다. 따라서 본 연구에서 산출된 ha당 잠재 꿀 생산량은 일정한 개화량 및 식재 조건에 따른 잠재적 수준으로 해석해야 하며, 실제 생산량은 수령, 수관폭, 개화량 및 식재밀도에 따라 달라질 수 있다 (Kim et al., 2022a; Samsonova et al., 2023).
한편, 황칠나무는 잎, 줄기를 활용하는 약용식물 및 도료 자원으로서 활용 가치가 높은 수종이라는 점을 고려할 때, 채밀을 주목적으로 식재하기보다 약용자원 생산으로 주로 활용하면서 부수적으로 양봉 산물을 생산하는 복합적 이용이 적절하다고 판단된다. 특히 주요 밀원수종의 개화가 감소하는 늦여름에 화밀을 공급한다는 점에서 황칠나무는 약용식물로서 본래의 활용 가치를 유지하면서 밀원 공백을 보완하는 보조 밀원수종으로서의 복합적 가치를 지닐 수 있다. 향후 지역과 연도에 따른 개화량의 변이와 실제 식재지의 밀도를 반영한 생산량 검증을 통해 황칠나무의 보조 밀원수종 활용 가능성을 구체적으로 평가할 필요가 있다.
Acknowledgments
본 연구는 국립산림과학원 일반연구사업 “밀원자원 발굴 특성·평가 및 다목적 이용 방안 연구 (Project No. FG0403-2023-01-2026)”의 지원에 의해 이루어진 결과로 이에 감사드립니다.
References
- 농림축산식품부. 2020. 양봉산업의 육성 및 지원에 관한 법률 시행규칙. 농림축산식품부령 제448호.
- 전라남도. 2022. 산림통계: 주요 임산물 생산 및 소득현황. 전라남도 동부지역본부.
-
Ali, H., J. Iqbal, H. S. Raweh and A. S. Alqarni. 2021. Proboscis behavioral response of four honey bee Apis species towards different concentrations of sucrose, glucose, and fructose. Saudi J. Biol. Sci. 28(6): 3275-3283.
[https://doi.org/10.1016/j.sjbs.2021.02.069]

-
Balakrishnan, R., D. Y. Cho, I. Su-Kim and D. K. Choi. 2020. Dendropanax morbiferus and other species from the genus Dendropanax: therapeutic potential of its traditional uses, phytochemistry, and pharmacology. Antioxidants 9(10): 962.
[https://doi.org/10.3390/antiox9100962]
-
Bertazzini, M., P. Medrzycki, L. Bortolotti, L. Maistrello and G. Forlani. 2010. Amino acid content and nectar choice by forager honeybees (Apis mellifera L.). Amino Acids 39(1): 315-318.
[https://doi.org/10.1007/s00726-010-0474-x]
-
Corbet, S. A. 2003. Nectar sugar content: estimating standing crop and secretion rate in the field. Apidologie 34(1): 1-10.
[https://doi.org/10.1051/apido:2002049]
-
Ghazoul, J. 2006. Floral diversity and the facilitation of pollination. J. Ecol. 94(2): 295-304.
[https://doi.org/10.1111/j.1365-2745.2006.01098.x]
-
Hendriksma, H. P., K. L. Oxman and S. Shafir. 2014. Amino acid and carbohydrate tradeoffs by honey bee nectar foragers and their implications for plant-pollinator interactions. J. Insect Physiol. 69: 56-64.
[https://doi.org/10.1016/j.jinsphys.2014.05.025]
-
Kim, M. S., H. Kim, S. D. Kim, S. J. Park, J. H. Song and S. H. Kim. 2015. Pollinator visit, characteristics of secreted nectar and analysis of nectar sugar and amino acid contents in flower of Dendropanax morbifera Lev. J. Apic. 30 (4): 307-314.
[https://doi.org/10.17519/apiculture.2015.11.30.4.307]
-
Kim, Y. K., H. W. Yoo, H. Y. Kwon and S. J. Na. 2021a. Estimation of nectar secretion, sugar content and honey production of Prunus mume (Siebold) Siebold & Zucc. J. Apic. 36(3): 141-147.
[https://doi.org/10.17519/apiculture.2021.09.36.3.141]
-
Kim, Y. K., H. W. Yoo, M. S. Park, H. Y. Kwon, M. J. Kim and S. J. Na. 2021b. Evaluation of honey production of Camellia japonica L. J. Apic. 36(3): 149-159.
[https://doi.org/10.17519/apiculture.2021.09.36.3.149]
-
Kim, Y. K., S. Lee, J. H. Song, M. J. Kim, U. Yunusbaev, M. L. Lee, M. S. Kim and H. W. Kwon. 2020. Comparison of biochemical constituents and contents in floral nectar of Castanea spp. Molecules 25: 4225.
[https://doi.org/10.3390/molecules25184225]
-
Kim, Y. K., S. J. Na, H. Y. Kwon and W. G. Park. 2022a. Comparison of nectar volume and sugar content according to nectar sampling method: focusing on the capillary tube and centrifuge method. J. Apic. 37(1): 25-34.
[https://doi.org/10.17519/apiculture.2022.04.37.1.25]
-
Kim, Y. K., S. J. Na, H. Y. Kwon and W. G. Park. 2022b. Evaluation of Honey Production of Ligustrum japonicum and Viburnum odoratissimum var. awabuki in the Southern Part of Korea. J. Apic. 37(1): 35-44.
[https://doi.org/10.17519/apiculture.2022.04.37.1.35]
- Lazaro, A., R. Lundgren and Ø. Totland. 2009. Co-occurrence, habitat use and phenology of pollinators in the high-latitude alpine: how does plant diversity influence pollinator diversity? Oecologia 160(3): 543-554.
-
Na, S. J., J. M. Park, H. Y. Kwon and Y. K. Kim. 2025. Assessment of floral nectar and amino acid yield in eight landscape trees for enhanced pollinator food resources in urban forests. Plants 14: 1924.
[https://doi.org/10.3390/plants14131924]
-
Na, S. J., Y. K. Kim and J. M. Park. 2024. Nectar characteristics and honey production potential of five rapeseed cultivars and two wildflower species in South Korea. Plants 13: 419.
[https://doi.org/10.3390/plants13030419]
-
Pacini, E., M. Nepi and J. L. Vesprini. 2003. Nectar biodiversity: a short review. Pl. Syst. Evol. 238(1-4): 7-21.
[https://doi.org/10.1007/s00606-002-0277-y]
-
Park, J. M., H. J. Kim, S. J. Won and S. J. Na. 2025c. Variation in floral nectar traits of four chestnut (Castanea spp.) cultivars: implications for pollinators and apiculture. Agriculture 15(22): 2358.
[https://doi.org/10.3390/agriculture15222358]
- Park, J. M., S. J. Na, H. Y. Kwon and Y. K. Kim. 2025a. Evaluation of nectar characteristics and potential honey production of Robinia pseudoacacia. J. Korean Soc. For. Sci. 114(1): 84-93.
-
Park, J. M., Y. K. Kim, H. Y. Kwon and S. J. Na. 2025b. The value of Ligustrum obtusifolium as a supplementary nectar source: quantitative analysis of nectar composition and honey production. J. Apic. 40(1): 89-95.
[https://doi.org/10.17519/apiculture.2025.04.40.1.89]
-
Petanidou, T. 2003. Nectar production and yield in Mediterranean plants. Pl. Syst. Evol. 238(1-4): 87-100.
[https://doi.org/10.1007/s00606-002-0278-x]
-
Petanidou, T., A. Van Laere, W. N. Ellis and E. Smets. 2006. What shapes amino acid and sugar composition in Mediterranean floral nectars? Oikos 115(1): 155-169.
[https://doi.org/10.1111/j.2006.0030-1299.14487.x]
-
Samsonova, I. D., V. N. Sattarov, R. A. Ilyasov and A. A. Plahova. 2023. Dynamics of honey productivity of Robinia pseudoacacia L. stands of the steppe Don region. Agric. Sci. Euro-North-East 24(4): 592-604.
[https://doi.org/10.30766/2072-9081.2023.24.4.592-604]
-
Takkis, K., T. Tscheulin and T. Petanidou. 2018. Differential effects of climate warming on the nectar secretion of early- and late-flowering Mediterranean plants. Front. Plant Sci. 9: 874.
[https://doi.org/10.3389/fpls.2018.00874]
-
Tew, N. E., J. Memmott, I. P. Vaughan, S. Bird, G. N. Stone, S. G. Potts and K. C. R. Baldock. 2021. Quantifying nectar production by flowering plants in urban and rural landscapes. J. Ecol. 109(4): 1747-1757.
[https://doi.org/10.1111/1365-2745.13598]
-
Timberlake, T. P., I. P. Vaughan and J. Memmott. 2019. Phenology of farmland floral resources reveals seasonal gaps in nectar availability for bumblebees. J. Appl. Ecol. 56(7): 1585-1596.
[https://doi.org/10.1111/1365-2664.13403]
-
Vaudo, A. D., J. F. Tooker, C. M. Grozinger and H. M. Patch. 2015. Bee nutrition and floral resource restoration. Curr. Opin. Insect Sci. 10: 133-141.
[https://doi.org/10.1016/j.cois.2015.05.008]