남부지역 봄 재배 시 유채 (Brassica napus L.) 품종별 화밀과 화분 생산량 및 화학적 조성 비교
Abstract
Rapeseed (Brassica napus L.) is an important herbaceous resource plant that provides both nectar and pollen to honey bees. This study evaluated flowering characteristics, nectar and pollen production potentials, and chemical composition of seven rapeseed cultivars under spring-sowing conditions in southern Korea. Flowering periods ranged from 17 to 28 days; ‘Baegun’ flowered earliest and had the longest flowering period, whereas ‘Jungmo 7002’ flowered latest and had the shortest period. Nectar volume ranged from 2.13 to 3.53 μL flower-1, and nectar sugar content ranged from 0.6 to 1.2 mg flower-1. Glucose and fructose accounted for approximately 99% of the total free sugars, indicating a hexose-dominant nectar composition. Estimated honey production potential ranged from 69.8 to 216.5 kg ha-1, with ‘Geumbyeol’ showing the highest value. Estimated pollen production potential ranged from 27.90 to 83.29 kg ha-1, with the highest value also observed in ‘Geumbyeol’. Free amino acid profiles differed between nectar and pollen. Glutamine was the predominant amino acid in nectar, followed by relatively high levels of histidine and proline, whereas asparagine, proline, leucine, and lysine were major components in pollen. Overall, ‘Geumbyeol’ showed high nectar and pollen production potentials, while ‘Baegun’ showed advantages in early and prolonged flowering. These results suggest that spring-sown rapeseed cultivars differ in their potential to provide nectar and pollen resources and provide useful information for cultivar selection when establishing spring forage resources for honey bees in southern Korea.
Keywords:
Rapeseed, Spring cultivation, Honey bee, Nectar, Pollen서 론
화밀 (nectar)과 화분 (pollen)은 꿀벌의 생존과 봉군 발달에 필요한 주요 먹이자원이다. 화밀은 주로 탄수화물과 에너지를 공급하며, 화분은 단백질, 아미노산의 주요 공급원으로 이용된다 (DeGrandi-Hoffman et al., 2010). 반대로 꿀벌은 식물의 수분을 매개하여 종자와 과실 형성을 촉진하고 식물의 번식과 생태계 유지에 기여한다 (Garibaldi et al., 2013). 이와 같은 식물과 꿀벌 간의 상호의존적 관계는 양봉산업의 생산 기반일 뿐만 아니라 농업생산성과 생태계 기능을 유지하는 데 중요한 역할을 한다.
국내 양봉농가 수와 사육봉군 수는 2023년 기준 각각 26,965가구와 2,576,963군으로, 2013년의 19,903가구와 1,756,993군에 비해 각각 35.5%와 46.7% 증가하였다 (MAFRA, 2025). 이처럼 국내 양봉산업의 규모는 지속적으로 확대되고 있으나, 벌꿀 생산 기반은 소수의 밀원식물에 편중되어 있어 안정적인 생산에 한계가 있다. 국내 벌꿀 생산은 아까시나무에 대한 의존도가 높으며, 기존 아까시나무의 노령화와 쇠퇴, 조림 기피에 따른 분포면적 감소가 문제로 지적되어 왔다 (Kim et al., 2021, 2022a). 국내 양봉농가를 대상으로 한 조사에서도 아까시나무의 쇠퇴와 개화기간 단축은 이동양봉의 어려움 중 하나였으며, 이에 따라 아까시나무에 대한 의존도를 완화하기 위한 대체 밀원식물의 발굴과 밀원 다양화 필요성이 제기되어 왔다 (Kang et al., 2017; Choi et al., 2021).
초본 밀원작물은 수목성 밀원과 달리 비교적 짧은 기간에 재배가 가능하고, 농경지나 유휴지에 대규모 단지를 조성할 수 있다는 장점이 있다. 이러한 측면에서 유채 (Brassica napus L.)는 이른 시기에 다량의 꽃을 형성하고 화밀과 화분을 동시에 제공하는 대표적인 초본성 밀원작물로 평가된다. 유채의 화밀 및 화분 공급능력은 품종에 따라 달라질 수 있으며, 밀원 가치를 평가할 때 품종 특성을 함께 고려하여야 한다 (Fairhurst et al., 2021; Na et al., 2024). 국내 유채 재배는 가을에 파종하여 월동 후 봄에 개화하는 겨울 재배와, 이른 봄에 파종하는 봄 재배로 구분할 수 있다. 유채의 파종시기와 품종은 개화시기와 개화지속기간에 영향을 미치며, 이를 활용하여 개화시기를 조절할 수 있다 (Lee et al., 2014; Kwon et al., 2021). 일반적으로 국내에서 겨울 재배는 10월경 파종하여 이듬해 3~4월에 개화한 뒤 6월경에 수확하는 반면, 봄 재배는 2~3월경 파종하여 5월에 개화하고 7월경에 수확한다. 유채는 비교적 긴 개화기간 (20~30일)을 가지며, 작형과 품종을 달리하여 개화시기를 조절할 수 있으므로 특정 시기에 집중된 밀원 공급을 분산하고 꿀벌의 먹이 공급기간을 늘리는 데 활용할 수 있다.
국내에서는 수목 및 초본성 밀원식물을 대상으로 개화 특성, 화밀 분비량, 화밀의 당 및 아미노산 조성, 잠재적 꿀 생산량 등을 평가하는 연구가 수행되어 왔다 (Kim et al., 2025; Park et al., 2025). 또한 국내 유채 품종을 대상으로 화밀 분비량과 당 및 아미노산 조성, 잠재적 꿀 생산량이 평가된 바 있다 (Na et al., 2024). 그러나 해당 연구는 중부지역에서 4월 중순에 파종하여 수행된 것으로, 파종시기와 재배지역의 차이에 따라 개화시기와 개화기간 등 밀원 공급에 대한 특성이 달라질 수 있기 때문에, 남부지역의 봄 재배 조건에서 품종별 특성을 별도로 평가할 필요가 있다. 특히 기존 연구는 화밀 중심의 연구가 이루어졌으며, 화분에 대한 품종별 평가는 이루어지지 않았다. 따라서 남부지역에서 봄 재배 유채를 양봉자원으로 활용하기 위해서는 개화와 화밀 특성뿐만 아니라 화분에 대한 특성을 함께 고려한 종합적인 평가가 필요하다. 이에 본 연구에서는 육성된 국내 7품종을 대상으로 남부지역의 봄 재배 조건에서 생육 및 개화 특성을 조사하고, 화밀과 더불어 화분의 생산량 및 화학적 조성을 비교·평가하였다. 이를 통해 남부지역 봄철 꿀벌 먹이자원 공급을 위한 유채 품종의 활용 가능성을 평가하고, 봄 재배 유채 밀원단지 조성을 위한 기초자료를 제공하고자 하였다.
재료 및 방법
1. 시험 재료 및 재배 방법
시험 재료인 유채 7품종은 ‘백운’, ‘중모 7001’, ‘금별’, ‘다강’, ‘다건’, ‘유려’, ‘중모 7002’이며, 시험은 국립식량과학원 소득식량작물연구소 시험포장에서 수행하였다 (34°58ʹN, 126°27ʹE). 파종량은 1 kg 10 a-1로 하였고, 줄 간격은 20 cm로 설정하여 2026년 2월 23일에 파종하였다. 시험구당 면적은 3×5.6 m2로 하였으며, 시험구 배치는 난괴법으로 3반복하였다. 시비는 파종 전 질소 (N), 인산 (P2O5) 및 칼리 (K2O)를 각각 10-8-8 kg 10 a-1의 성분량과 퇴비 1,000 kg 10 a-1를 시용하였다.
2. 개화기 조사
품종별 개화 특성을 비교하기 위해 개화 시작기와 개화 종기를 조사하였다. 개화 시작기는 시험구 내 조사 개체의 50% 이상에서 첫 꽃이 개화한 시점으로 하였으며, 개화 종기는 조사 개체의 50% 이상에서 주경 총상화서에 미개화 꽃봉오리가 더 이상 관찰되지 않는 시점으로 하였다. 품종별 개체당 꽃 수를 조사하기 위하여 각 시험구에서 3개체를 선정하였다. 총상화서 형태로 개화가 진행되는 유채의 특성상, 조사 시 개화된 꽃과 미개화 꽃봉오리의 경계에 표찰을 부착하여 조사 위치를 구분하였다. 꽃 수는 2~3일 간격으로 조사하였으며, 개화기간 동안 조사된 꽃 수를 누적하여 개체당 총 꽃 수를 산출하였다.
3. 화밀 및 화분 샘플링
화밀 채취는 원심분리법을 참고하여 일부 변형하여 수행하였다 (Swanson and Shuel, 1950; Kim et al., 2022b). 화밀이 꿀벌 등의 곤충에 의해 제거되는 것을 방지하기 위해 시험구에 방충망을 설치하여 화분매개자의 접근을 차단하였다. 꽃 표면의 이슬 및 수분에 의한 영향을 최소화하기 위해 꽃은 14:00에 수집하였다. 화밀 채취는 품종별 개화최성기를 고려하여 3회 수행하였다. 채취일자마다 품종별로 각 시험구 (3반복)에서 50개의 꽃을 4반복으로 채취하였다. 채취한 꽃은 꽃잎, 암술, 수술 및 꽃받침을 제거한 후 pore size 0.3 mm의 nylon mesh가 장착된 filter tube에 넣고 2,000×g에서 5분간 원심분리하여 화밀을 회수하였다. 회수한 화밀은 유리당 및 유리아미노산 분석을 위하여 80% (v/v) ethanol로 10배 희석한 후 –20℃에서 보관하였다.
화분의 채취는 Denisow (2011)의 ether-ethanol method를 일부 변형하여 수행하였다. 품종별 개화 최성기에 약이 충분히 발달하였으나 아직 약벽이 파괴되지 않은 성숙한 꽃봉오리를 채취하였다. 화분 채취는 40개의 꽃봉오리를 1개의 반복으로 하여 시험구당 6반복씩 채취하였다. 각 꽃봉오리 (하나의 꽃봉오리당 6개의 약)에서 총 240개의 약 (anther)을 분리한 후, 33℃의 건조기에서 7일간 건조하였다. 건조된 약에 ether 2 mL를 첨가하여 처리한 후, 70% (v/v) ethanol 4.5 mL를 이용하여 3회 세척하였고, 이후 100 μm mesh filter를 이용하여 화분을 분리하였다. 분리된 화분을 33℃의 건조기에서 1일간 건조한 후 화분 무게를 측정하여 꽃당 화분량 (Pollen mass per flower, mg flower-1)을 구하였다.
4. 화밀 및 화분 생산량 계산
꽃당 화밀 생산량 (Nectar sugar content per flower, mg flower-1)은 꽃당 화밀량 (Nectar volume per flower, μL flower-1)에 총 유리당 농도 (Total free sugar concentration, μg μL-1)를 곱한 후, 단위를 mg으로 환산하여 산출하였다. 식물체당 화밀 생산량 (Nectar sugar production per plant, mg plant-1)은 꽃당 화밀 생산량과 식물체당 꽃 수 (Number of flowers per plant)를 곱하여 계산하였다. 잠재적 화밀 생산량 (Nectar sugar production potential, kg ha-1)은 식물체당 화밀 생산량과 재식밀도 (Plant density, plant m-2)를 곱하여 산출하였다. 잠재적 꿀 생산량 (Honey production potential, kg ha-1)은 화밀당-벌꿀 환산비 (85 : 100)를 적용하여 잠재적 화밀 생산량에 1.1765를 곱하여 산출하였다 (Petanidou et al., 2003).
식물체당 화분 생산량 (Pollen production per plant, g plant-1)은 꽃당 화분량과 식물체당 꽃 수를 곱하여 계산하였으며, 잠재적 화분 생산량 (Pollen production potential, kg ha-1)은 식물체당 화분 생산량에 재식밀도를 곱하여 산출하였다.
5. 유리당 및 유리아미노산 분석
화밀의 유리당 함량 분석을 위해 80% ethanol을 이용하여 희석한 후 0.2 μm syringe filter로 필터링한 다음, HPLC를 이용하여 분석하였다. HPLC는 Dionex Ultimate 3000 (Dionex Softron GmbH, Germering, Germany)을 사용하였으며, 검출기와 분석 컬럼은 각각 Shodex RI-101 (Showa Denko, Tokyo, Japan)과 Sugar-Pak column (300×6.5 mm, Waters, MA, USA)을 사용하였다. 컬럼 오븐 온도는 70℃로 유지하였고, 이동상은 3차 증류수를 사용하였다. 유속은 0.5 mL min-1, 주입량은 10 μL로 설정하였다. 분석 및 데이터 처리는 Chromeleon software version 6를 이용하였다. 각 유리당의 정량은 표준물질을 이용하여 작성한 검량선과 시료의 peak area를 비교하여 산출하였다. 화밀 및 화분 시료의 유리아미노산 분석을 위해 시료 형태에 따라 전처리 조건을 구분하였다. 화밀은 액상 시료로서, 80% ethanol을 이용하여 희석한 후 0.2 μm syringe filter로 여과하여 분석에 사용하였다. 화분 시료는 분말 형태로, 0.1 g에 유리아미노산 추출 buffer 5 mL를 첨가하였다. 추출 buffer는 0.1 M perchloric acid와 0.1% metaphosphoric acid를 3차 증류수에 용해하여 제조하였다. 혼합액은 초음파 추출기를 이용하여 1시간 추출한 후, 0.2 μm syringe filter로 여과하여 분석에 사용하였다. HPLC는 Dionex Ultimate 3000 (Dionex Softron GmbH)을 사용하였으며, 컬럼은 Inno C18 column (4.6×150 mm, 5 μm; Young Jin Biochrom, Seongnam, Republic of Korea)을 이용하였다. 컬럼 온도는 40℃, 시료 온도는 20℃로 유지하였으며, 주입량은 0.5 μL로 설정하였다. 이동상 A는 40 mM sodium phosphate dibasic buffer (pH 7.0)를 사용하였고, 이동상 B는 3차 증류수, acetonitrile 및 methanol을 10 : 45 : 45 (v/v/v) 비율로 혼합하여 사 용하였다. 검출기는 fluorescence detector와 UV detector를 사용하였다. OPA (o-Phthalaldehyde) 유도체는 excitation 340 nm 및 emission 450 nm, FMOC (Fluorenylmethoxycarbonyl chloride) 유도체는 excitation 266 nm 및 emission 305 nm, UV detector는 338 nm에서 검출하였다. 각 아미노산 성분은 표준물질을 이용하여 작성한 검량선과 시료의 peak area를 비교하여 산출하였다. 화밀의 유리당과 아미노산은 채취일자별로 확보한 시료를 분석하였으며, 화분은 분석에 필요한 시료량의 한계로 인해 품종당 1개의 시료를 분석하였다.
6. 통계 분석
통계 분석은 R software (version 4.6.1, R Foundation for Statistical Computing, Vienna, Austria)를 이용하여 수행하였다. 품종별 재식밀도, 생육 특성 및 화밀 및 화분 관련 형질은 품종과 블록을 요인으로 이원분산분석 (Two-way ANOVA)을 실시하였으며, 품종 간 유의한 차이가 인정된 경우 Duncan의 다중검정 (Duncan’s multiple range test, DMRT)을 실시하였다 (p<0.05).
결 과
1. 품종별 개화시기 및 생육 특성
유채 7품종의 개화시기 및 개화기간은 품종에 따라 차이를 보였다 (Table 1). ‘백운’과 ‘중모 7001’은 각각 5월 2일과 6일에 일찍 개화한 반면, ‘유려’와 ‘중모 7002’는 각각 5월 13일과 19일에 늦게 개화하였다. 개화기간은 17~28일의 범위였으며, ‘백운’이 가장 길고 ‘중모 7002’가 가장 짧았다.

Flowering periods and nectar sampling dates of rapeseed cultivars
품종별 재식밀도 및 생육 특성은 Table 2에 나타내었다. 재식밀도는 제곱미터당 34.0~55.6개의 범위로 나타났으며 통계적으로 유의성은 없었다. 초장, 분지수, 주경 직경은 품종 간 통계적으로 유의한 차이가 나타났으나, 개체당 꽃 수는 품종 간 유의한 차이는 없었으며, ‘중모 7001’만이 유일하게 평균 200개 이하의 꽃 수를 나타내었다.
Plant density and growth characteristics of rapeseed cultivars
2. 품종별 화밀 특성 및 잠재적 꿀 생산량
품종별 꽃당 화밀량, 유리당 농도 및 화밀 생산량은 Table 3에 나타내었다. 꽃당 화밀량과 화밀 생산량은 품종별로 유의한 차이가 나타났으며, ‘금별’은 모두 가장 높은 값을 나타냈다. 화밀의 유리당은 대부분 glucose와 fructose로 구성되었으며, 전체 농도의 약 99%를 차지하였다. Sucrose 함량은 모든 품종에서 낮게 나타났다. 식물체당 화밀 생산량과 잠재적 화밀 생산량 및 잠재적 꿀 생산량은 Table 4에 나타내었다. 식물체당 화밀 생산량은 ‘중모 7001’에서 134.8 mg plant-1로 가장 낮았으며, ‘금별’에서 330.8 mg plant-1로 가장 높았다. 잠재적 화밀 생산량은 ‘중모 7002’에서 59.3 kg ha-1로 가장 낮았고, ‘금별’에서 184.0 kg ha-1로 가장 높았다. 화밀당-벌꿀 환산계수를 적용하여 산출한 봄 재배 시 유채의 잠재적 꿀 생산량은 품종에 따라 69.8~216.5 kg ha-1 범위로 나타났으며, 마찬가지로 ‘금별’이 품종 중 가장 높았으며, 중모 7002가 가장 낮았다.
Nectar volume, free sugar concentrations, and nectar sugar content of rapeseed cultivars
Estimated nectar sugar and honey production potentials of rapeseed cultivars
3. 품종별 잠재적 화분 생산량
품종별 꽃당 화분량, 식물체당 화분 생산량 및 잠재적 화분 생산량은 Table 5에 나타내었다. 꽃당 화분량은 ‘백운’과 ‘금별’에서 0.56 mg flower-1로 가장 높았으며, ‘유려’와 ‘중모 7002’는 0.38 mg flower-1로 가장 낮았다. 개체당 화분 생산량은 ‘금별’과 ‘다강’에서 0.15 g plant-1로 가장 높았다. 봄 재배 시 유채의 잠재적 화분 생산량은 27.90~83.29 kg ha-1 범위였으며, ‘금별’에서 가장 높았다.
Estimated pollen production potential of rapeseed cultivars
4. 화밀 및 화분의 유리아미노산 조성
품종별 화밀의 유리아미노산 농도와 화분의 유리아미노산 함량은 각각 Figs. 1과 2에 나타내었다. 화밀의 경우, 모든 품종에서 glutamine이 가장 높은 농도를 나타냈으며, 다음으로 histidine과 proline이 높은 수준을 보였다. 특히 glutamine은 품종에 따라 전체 아미노산 중 34.5~52.2%를 차지하여 다른 유리아미노산에 비해 현저히 높은 농도를 나타내었다. 화분의 유리아미노산 조성은 화밀과 다른 양상을 나타냈다. 화분의 유리아미노산 조성에서는 품종별 단일 분석 시료에서 asparagine, proline, leucine, lysine이 상대적으로 높은 함량을 보였다.
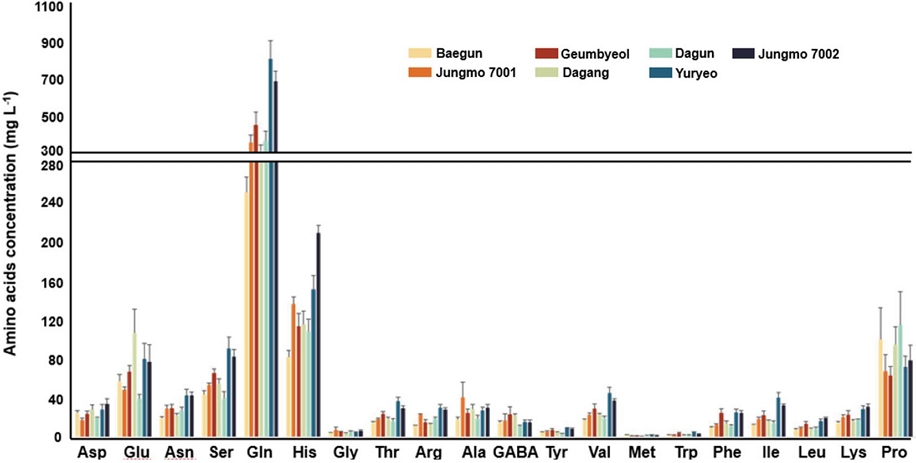
Amino acid concentrations in floral nectar of rapeseed cultivars. Bars represent means of three sampling dates, and error bars indicate standard deviations.
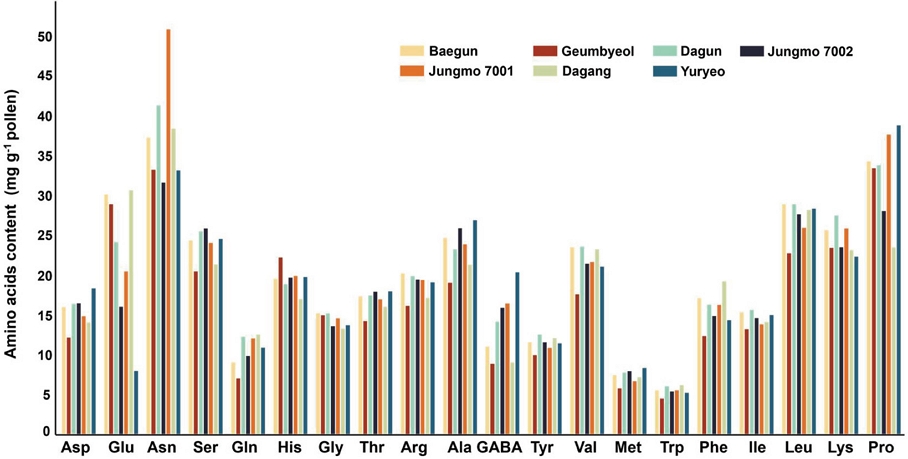
Amino acid contents in pollen of rapeseed cultivars. Each bar represents a single analytical value obtained from one pollen sample per cultivar (n=1).
고 찰
유채를 밀원 및 화분원 식물로 활용하기 위해서는 꿀벌 활동시기에 꽃이 충분히 형성되고 장기간 개화하여 화밀과 화분을 공급할 수 있어야 한다. 유채는 춘화요구성에 따라 겨울, 반겨울 및 봄형으로 구분되며, 겨울형은 개화를 위해 저온처리가 반드시 필요한 반면, 봄형은 춘화처리 없이 개화할 수 있다 (Lu et al., 2019). 따라서, 남부지역에서 유채를 봄에 파종하여 밀원식물로 이용하기 위해서는 파종 후 비교적 빠르게 개화하여 충분한 개화기간을 확보할 수 있는 품종을 선택하는 것이 중요하다. 본 연구에서도 봄 재배에 따른 품종의 개화시기는 뚜렷한 차이를 나타냈으며, 이는 각 품종의 저온 요구성 등 개화 관련 유전적 특성에 기인한 것으로 판단된다. 특히, ‘유려’와 ‘중모 7002’의 개화시기는 다른 품종보다 늦었으며, 5월 초부터 밀원 공급을 하고자 하는 경우에는 불리한 특성을 나타냈다 (Table 1). 반면, ‘백운’은 가장 일찍 개화하면서 개화기간도 가장 길어, 남부지역에서 봄철 조기에 화밀과 화분식물로 활용할 수 있는 유리한 품종으로 평가된다. 개화시기뿐만 아니라 생육 특성도 품종별로 차이가 나타났다 (Table 2). 초장, 분지수, 주경 직경은 품종 간 통계적 유의성이 나타났으며, 상대적으로 개화 시작이 빠르면 초장이 짧거나 주경의 두께가 얇은 경향을 보였다.
유채 7품종의 꽃당 화밀 생산량은 0.6~1.2 mg flower-1의 범위를 나타냈으며, ‘금별’에서 가장 높았다 (Table 3). 잠재적 화밀과 꿀 생산량은 꽃당 화밀 생산량뿐만 아니라 개체당 꽃 수와 재식밀도의 영향도 받는다. ‘유려’의 꽃당 화밀 생산량은 0.6 mg flower-1로 ‘중모 7001’의 0.7 mg flower-1보다 낮았으나, 개체당 꽃 수는 ‘유려’가 265.3개로 ‘중모 7001’의 184.0개보다 많았다 (Table 2). 이에 따라 식물체당 화밀 생산량은 ‘유려’가 154.1 mg plant-1로 ‘중모 7001’ (134.8 mg plant-1)보다 높게 나타났다. ‘중모 7002’의 식물체당 화밀 생산량은 174.7 mg plant-1로 ‘중모 7001’과 ‘유려’보다 높았으나, 재식밀도는 조사 품종 중 가장 낮았기 때문에 잠재적 화밀 생산량이 가장 낮게 나타났다 (Tables 2 and 4). 이러한 결과는 봄 재배 유채의 밀원 가치를 평가할 때 품종별 화밀 특성만을 고려하는 것이 아닌 봄 재배의 적합성도 함께 고려해야 함을 보여준다.
화밀 분비량과 당 농도는 품종 특성뿐만 아니라 기온과 상대습도 같은 기상 조건의 영향을 받을 수 있다. 유채에서도 기온과 상대습도가 화밀량과 당 농도에 영향을 미치는 것으로 보고되었다 (Liu et al., 2023). 본 연구에서는 품종별 화밀 채취일이 상이하였기 때문에, 채취시기의 기상 조건 차이가 화밀 특성에 일부 영향을 미쳤을 가능성이 있다. 따라서 향후 연구에서는 품종 특성과 함께 기상 조건에 따른 환경적 변이를 고려할 필요가 있다. 한편, 국내 중부지역에서 봄 재배 시 유채 5품종에 대하여 잠재적 꿀 생산량을 분석하였으며, 42.4~107.1 kg ha-1의 범위로 품종 간 차이가 나타났다고 보고되었다 (Na et al., 2024). 본 연구의 잠재적 꿀 생산량은 69.8~216.5 kg ha-1로 품종에 따른 변이가 확인되었다. 다만 두 연구는 시험지역과 연도, 파종시기, 재배 방법 등이 서로 다르므로 잠재적 꿀 생산량을 직접 비교하여 해석하는 데는 한계가 있다. 이러한 결과는 유채의 밀원 가치를 평가할 때 꽃당 화밀 특성뿐만 아니라 품종의 개화 및 생육 특성과 재배 조건을 고려하여 평가되어야 함을 시사한다.
화밀의 당 조성은 sucrose와 hexose인 glucose 및 fructose의 상대적 비율에 따라 구분할 수 있으며, sucrose/(glucose+fructose) 비율이 0.1 미만인 경우를 hexose-dominant로 분류하였다 (Baker and Baker, 1983). 본 연구에서는 glucose와 fructose가 총 유리당의 99% 이상을 차지하고 sucrose는 1% 미만으로 나타나 모든 품종이 hexose-dominant 화밀에 해당하였으며, 기존 연구와도 일치한다 (Kevan et al., 1991; Pierre et al., 1999; Bertazzini and Forlani, 2016). Glucose는 fructose보다 물에 대한 용해도가 낮기 때문에 glucose 함량이 높으면 결정화가 빠르게 진행되는 경향이 있다 (Bhandari et al., 1999; Escuredo et al., 2014). 유채 화밀에서 상대적으로 높은 glucose 비율은 유채 유래 벌꿀의 빠른 결정화 특성과 관련되며, Kevan et al. (1991)은 유채 화밀의 높은 glucose/fructose 비율이 유채꿀의 빠른 결정화와 관련된다고 보고하였다.
화분은 꿀벌의 주요 단백질과 지질 공급원으로서 아미노산, 비타민 등 다양한 영양성분을 제공하며, 특히 어린 일벌의 하인두샘 (hypopharyngeal gland) 발달과 봉군 유지에 중요한 역할을 한다 (Wright et al., 2018). 최근에는 화분의 단백질 및 아미노산 조성이 꿀벌의 생리와 발달에 중요한 요소로 강조되고 있다 (Bryś and Strachecka, 2024). 특히, 유채 화분은 배와 살구 화분과 비교하여 꿀벌 유충의 발달에 유리한 특성을 나타낸다고 보고되어, 유채 화분의 영양적 가치가 중요시되었다 (Pang et al., 2022)
본 연구에서 유채 7품종의 꽃당 화분량은 0.38~0.56 mg flower-1의 범위를 보였으며, 잠재적 화분 생산량은 27.90~83.29 kg ha-1로 나타났고, ‘금별’이 가장 높은 잠재적 화분 생산량을 보였다 (Table 5). 유채에서 꽃당 화분립 수와 약의 형태 등 화분 생산과 관련된 형질이 품종 및 유전자형에 따라 차이를 나타낸다 (Saha et al., 2011; Fairhurst et al., 2021). 본 연구에서도 꽃당 화분 생산량은 품종에 따라 통계적으로 유의한 차이를 나타냈으며, 이는 품종별 유전적 배경에 따라 화분 형성능력 특성 차이가 반영된 것으로 사료된다. 또한, 화밀과 마찬가지로 잠재적 화분 생산량은 개화량과 재식밀도에 의해 산출되므로, 품종별 봄 재배 적합성이 중요한 요소로 판단된다. 따라서 벌의 먹이 공급 측면에서 유채 품종을 평가할 때는 밀원 (꿀) 생산량뿐만 아니라 화분 생산능력도 함께 고려되어야 함을 시사한다.
화밀과 화분의 생산량뿐만 아니라 아미노산 조성 또한 꿀벌의 영양적 측면에서 중요하다. 꿀벌은 arginine, histidine, isoleucine, leucine, lysine, methionine, phenylalanine, threonine, tryptophan, valine을 몸속에서 충분히 합성하지 못하므로 먹이를 통해 공급받아야 하는 필수 아미노산에 속한다 (de Groot, 1953). 본 연구에서 화밀은 7품종 모두 glutamine이 가장 높은 농도를 나타냈으며, histidine과 proline은 상대적으로 높은 수준을 보였다 (Fig. 1). 화분에서는 화밀과 달리 품종별로 차이가 있으나 asparagine, leucine, lysine, proline이 상대적으로 높은 수준을 나타냈다 (Fig. 2). Glutamine, asparagine, proline은 필수 아미노산은 아니지만, 꿀벌의 아미노산 대사 및 영양성분 감지와 관련된 성분이다. Gage et al. (2020)은 화분을 섭취한 일벌에서 연령 증가에 따라 뇌의 glutamine 농도가 증가하였으며, 특히 화분을 섭취하지 않은 개체에서는 이러한 변화가 제한적임을 보고하였으며, Linander et al. (2012)는 꿀벌이 asparagine의 냄새를 구별할 수 있다고 보고하였다. 또한, 꿀벌의 아미노산 미각 수용체인 AmGr10은 glutamine과 asparagine과 더불어 aspartate, arginine, lysine에 반응하는 것이 확인되어 꿀벌의 먹이 영양상태 감지와 관련될 가능성이 제기되었다 (Lim et al., 2019). 한편, Micheu et al. (2000)은 비행을 한 꿀벌의 혈림프 proline 농도가 감소하고, proline의 산화 적 이용이 증가하는 것을 확인하여 proline이 비행 대사에 이용될 수 있음을 시사하였다. 또한, 꿀벌이 당만 함유한 인공화밀보다 proline이 첨가된 인공화밀을 선호한다고 보고되어, proline이 꿀벌의 섭식과 방화에도 영향을 줄 가능 성을 제시하였다 (Bertazzini et al., 2010). Histidine, leucine, lysine은 필수 아미노산에 속하며, histidine은 꿀벌의 시각 계와 중추신경계에서 신경전달에 관여하는 것으로 알려져 있다 (Bornhauser and Meyer, 1997). 또한 leucine은 유충의 단백질 및 아미노산 대사에 영향을 미치는 것으로 보고되었다 (Ma et al., 2016). Lysine은 유충의 영양상태 유지에 중요한 역할을 하며, lysine 함량이 증가하면 영양부족 환경에서 유충의 체중 감소를 완화할 수 있다 (Parish et al., 2022). 다만, 화분의 경우 유리아미노산 분석은 시료량의 제한으로 품종당 1개 시료를 이용하여 수행하였다. 따라서 본 연구에서 제시된 화분의 유리아미노산 조성은 각 품종의 조성 특성을 파악하기 위한 예비적 스크리닝 자료로 해석하는 것이 적절하다. 향후 독립적인 반복 시료를 확보한 추가 분석을 통해 품종에 따른 화분 아미노산 조성의 변이를 검증할 필요가 있다.
종합하면, 봄 재배 유채 품종의 밀원 가치는 개화시기와 기간, 재식밀도, 꽃 수와 같은 품종의 농업적 형질과 더불어 화밀 및 화분 생산 잠재량과 화학적 조성을 종합적으로 고려하여 평가하여야 한다. ‘백운’은 품종 중 개화가 가장 빠르고 개화기간이 길어 꿀벌의 먹이자원 공급 측면에서 장점이 있다. ‘금별’은 개체당 꽃 수와 재식밀도가 상대적으로 높고, 잠재적 꿀 생산량과 화분 생산량이 품종 중 가장 높게 나타났으며 ‘다강’도 비교적 높은 생산량을 나타냈다. 따라서, 남부지역에서 ‘금별’이 봄 재배 시 화밀과 화분을 공급할 수 있는 유망 품종으로 판단되었으며, ‘백운’과 ‘다강’은 각각 조기 개화와 잠재적 화밀과 화분 생산 측면에서 활용 가치가 있을 것으로 사료된다. 다만, 본 연구는 단일 지역에서 단일 연도만 수행되었기 때문에 연차 및 재배 환경에 따른 변이를 충분히 반영하지 못한 한계가 있으며, 향후 여러 지역에서의 다년차 검증이 필요하다. 이러한 제한점에도 불구하고, 본 연구는 남부지역 봄 재배 조건에서 유채 품종별 개화 특성과 화밀 및 화분 생산 잠재량과 화학적 조성을 함께 평가하였다는 점에서 의의가 있으며, 향후 봄철 밀원단지 조성을 위한 품종 선택의 기초자료로 활용될 수 있을 것으로 판단된다.
Acknowledgments
본 연구는 농촌진흥청 국립식량과학원 연구사업 (과제명: 다목적 밀원용 유채 가치 증진 및 재배 기술 개발 (2세부), 과제번호: PJ017639022026)의 지원으로 수행되었습니다.
References
- Baker, H. G. and I. Baker. 1983. Floral nectar sugar constituents in relation to pollinator type. pp. 117-141. in Handbook of Experimental Pollination Biology, eds. by C. E. Jones and R. J. Little. Van Nostrand Reinhold, New York.
-
Bertazzini, M. and G. Forlani. 2016. Intraspecific variability of floral nectar volume and composition in rapeseed (Brassica napus L. var. oleifera). Front. Plant Sci. 7: 288.
[https://doi.org/10.3389/fpls.2016.00288]

-
Bertazzini, M., P. Medrzycki, L. Bortolotti, L. Maistrello and G. Forlani. 2010. Amino acid content and nectar choice by forager honeybees (Apis mellifera L.). Amino Acids 39: 315-318.
[https://doi.org/10.1007/s00726-010-0474-x]
-
Bhandari, B., B. D’Arcy and C. Kelly. 1999. Rheology and crystallization kinetics of honey: Present status. Int. J. Food Prop. 2: 217-226.
[https://doi.org/10.1080/10942919909524606]
-
Bornhauser, B. C. and E. P. Meyer. 1997. Histamine-like immunoreactivity in the visual system and brain of an orthopteran and a hymenopteran insect. Cell Tissue Res. 287: 211-221.
[https://doi.org/10.1007/s004410050747]
-
Bryś, M. S. and A. Strachecka. 2024. The key role of amino acids in pollen quality and honey bee physiology - A review. Molecules 29: 2605.
[https://doi.org/10.3390/molecules29112605]
-
Choi, J. Y., K. Lim, M. Oh and S. Lee. 2021. Foraging activity of honeybee and seasonal composition of major honey plants in central area of South Korea. J. Apic. 36: 125-139.
[https://doi.org/10.17519/apiculture.2021.09.36.3.125]
- de Groot, A. P. 1953. Protein and amino acid requirements of the honeybee (Apis mellifica L.). Physiol. Comp. Oecol. 3: 197-285.
-
DeGrandi-Hoffman, G., Y. Chen, E. Huang and M. H. Huang. 2010. The effect of diet on protein concentration, hypopharyngeal gland development and virus load in worker honey bees (Apis mellifera L.). J. Insect Physiol. 56: 1184-1191.
[https://doi.org/10.1016/j.jinsphys.2010.03.017]
-
Denisow, B. 2011. Pollen production of selected ruderal plant species in the Lublin area. Rozprawy Naukowe Uniwersytetu Przyrodniczego w Lublinie 351. Wydawnictwo Uniwersytetu Przyrodniczego w Lublinie, Lublin, Poland. 86 pp.
[https://doi.org/10.24326/mon.2025.17]
-
Escuredo, O., I. Dobre, M. Fernández-González and M. C. Seijo. 2014. Contribution of botanical origin and sugar composition of honeys on the crystallization phenomenon. Food Chem. 149: 84-90.
[https://doi.org/10.1016/j.foodchem.2013.10.097]
-
Fairhurst, S. M., L. J. Cole, T. Kocarkova, C. Jones-Morris, A. Evans and G. Jackson. 2021. Agronomic traits in oilseed rape (Brassica napus) can predict foraging resources for insect pollinators. Agronomy 11: 440.
[https://doi.org/10.3390/agronomy11030440]
-
Gage, S. L., S. Calle, N. Jacobson, M. Carroll and G. DeGrandi-Hoffman. 2020. Pollen alters amino acid levels in the honey bee brain and this relationship changes with age and parasitic stress. Front. Neurosci. 14: 231.
[https://doi.org/10.3389/fnins.2020.00231]
-
Garibaldi, L. A., I. Steffan-Dewenter, R. Winfree, M. A. Aizen, R. Bommarco, S. A. Cunningham and A. M. Klein. 2013. Wild pollinators enhance fruit set of crops regardless of honey bee abundance. Science 339: 1608-1611.
[https://doi.org/10.1126/science.1230200]
-
Kang, D. Y., A. Seol, J. C. Oh, Y. K. Jung, H. Han and J. S. Chung. 2017. Analyzing the management characteristics of beekeeping households according to their beekeeping types. J. Apic. 32: 1-9.
[https://doi.org/10.17519/apiculture.2017.04.32.1.1]
-
Kevan, P. G., H. Lee and R. W. Shuel. 1991. Sugar ratios in nectars of varieties of canola (Brassica napus). J. Apic. Res. 30: 99-102.
[https://doi.org/10.1080/00218839.1991.11101240]
-
Kim, H. J., J. M. Park, S. J. Won and S. J. Na. 2025. Evaluation of honey production of Rhus chinensis, Lespedeza bicolor, and Amorpha fruticosa for ecological restoration. J. Apic. 40: 245-253.
[https://doi.org/10.17519/apiculture.2025.09.40.3.245]
-
Kim, Y. K., H. W. Yoo, M. S. Park, H. Y. Kwon, M. J. Kim and S. J. Na. 2021. Evaluation of honey production of Camellia japonica L. J. Apic. 36: 149-159.
[https://doi.org/10.17519/apiculture.2021.09.36.3.149]
-
Kim, Y. K., S. J. Na, H. Y. Kwon and W. G. Park. 2022a. Evaluation of honey production of Ligustrum japonicum and Viburnum odoratissimum var. awabuki in the southern part of Korea. J. Apic. 37: 35-44.
[https://doi.org/10.17519/apiculture.2022.04.37.1.35]
-
Kim, Y. K., S. J. Na, H. Y. Kwon and W. G. Park. 2022b. Comparison of nectar volume and sugar content according to nectar sampling method: Focusing on the capillary tube and centrifuge method. J. Apic. 37: 25-34.
[https://doi.org/10.17519/apiculture.2022.04.37.1.25]
- Kwon, D. E., K. S. Kim, E. J. Hwang, J. C. Park, J. E. Lee and Y. H. Lee. 2021. Changes in growth and productivity characteristics by sowing date on spring sowing rapeseed (Brassica napus L.) in paddy field of southern region of South Korea. Korean J. Crop Sci. 66: 80-86.
-
Lee, T. S., Y. H. Lee, K. S. Kim, H. K. Lee, Y. S. Jang, I. H. Choi and K. S. Kim. 2014. Changes of growth and flowering characteristics in rapeseed cultivars with different sowing date. Korean J. Plant Res. 27: 80-88.
[https://doi.org/10.7732/kjpr.2014.27.1.080]
-
Lim, S., J. Jung, U. Yunusbaev, R. Ilyasov and H. W. Kwon. 2019. Characterization and its implication of a novel taste receptor detecting nutrients in the honey bee, Apis mellifera. Sci. Rep. 9: 11620.
[https://doi.org/10.1038/s41598-019-46738-z]
-
Linander, N., N. Hempel de Ibarra and M. Laska. 2012. Olfactory detectability of L-amino acids in the European honeybee (Apis mellifera). Chem. Senses 37: 631-638.
[https://doi.org/10.1093/chemse/bjs044]
-
Liu, R., Z. Wei, C. Liang, Y. Huang, G. Ding, Y. Jiang and J. Huang. 2023. Relationships between flower opening time, environmental conditions, corolla opening size and nectar production in five winter oilseed rape (Brassica napus L.) cultivars in China. J. Apic. Sci. 67: 57-72.
[https://doi.org/10.2478/jas-2023-0005]
-
Lu, K., L. Wei, X. Li, Y. Wang, J. Wu, M. Liu, C. Zhang, Z. Chen, Z. Xiao, H. Jian, F. Cheng, K. Zhang, H. Du, X. Cheng, C. Qu, W. Qian, L. Liu, R. Wang, Q. Zou, J. Ying, X. Xu, J. Mei, Y. Liang, Y. R. Chai, Z. Tang, H. Wan, Y. Ni, Y. He, N. Lin, Y. Fan, W. Sun, N. N. Li, G. Zhou, H. Zheng, X. Wang, A. H. Paterson and J. Li. 2019. Whole-genome resequencing reveals Brassica napus origin and genetic loci involved in its improvement. Nat. Commun. 10: 1154.
[https://doi.org/10.1038/s41467-019-09134-9]
-
Ma, L., Y. Wang, W. Zhang, H. Wang, Z. Liu and B. Xu. 2016. Alterations in protein and amino acid metabolism in honeybees (Apis mellifera) fed different L-leucine diets during the larval stage. J. Asia Pac. Entomol. 19: 769-774.
[https://doi.org/10.1016/j.aspen.2016.07.005]
- MAFRA (Ministry of Agriculture, Food and Rural Affairs). 2025. Other Livestock Statistics, 2024. Ministry of Agriculture, Food and Rural Affairs, pp. 44-47.
-
Micheu, S., K. Crailsheim and B. Leonhard. 2000. Importance of proline and other amino acids during honeybee flight - Apis mellifera carnica POLLMANN. Amino Acids 18: 157-175.
[https://doi.org/10.1007/s007260050014]
-
Na, S. J., Y. K. Kim and J. M. Park. 2024. Nectar characteristics and honey production potential of five rapeseed cultivars and two wildflower species in South Korea. Plants 13: 419.
[https://doi.org/10.3390/plants13030419]
-
Pang, C., K. Dong, Y. Guo, G. Ding, Y. Lu, Z. Guo, J. Wu and J. Huang. 2022. Effects of three types of pollen on the growth and development of honey bee larvae (Hymenoptera, Apidae). Front. Ecol. Evol. 10: 870081.
[https://doi.org/10.3389/fevo.2022.870081]
-
Parish, A. J., D. W. Rice, V. M. Tanquary, J. M. Tennessen and I. L. G. Newton. 2022. Honey bee symbiont buffers larvae against nutritional stress and supplements lysine. ISME J. 16: 2160-2168.
[https://doi.org/10.1038/s41396-022-01268-x]
- Park, J. M., S. J. Na, H. Y. Kwon and Y. K. Kim. 2025. Evaluation of nectar characteristics and potential honey production of Robinia pseudoacacia. J. Korean Soc. For. Sci. 114: 84-93.
-
Petanidou, T. 2003. Introducing plants for bee-keeping at any cost? Assessment of Phacelia tanacetifolia as nectar source plant under xeric Mediterranean conditions. Plant Syst. Evol. 238: 155-168.
[https://doi.org/10.1007/s00606-002-0278-x]
-
Pierre, J., J. Mesquida, R. Marilleau, M. H. Pham-Delègue and M. Renard. 1999. Nectar secretion in winter oilseed rape, Brassica napus - quantitative and qualitative variability among 71 genotypes. Plant Breed. 118: 471-476.
[https://doi.org/10.1046/j.1439-0523.1999.00421.x]
-
Saha, S. C., S. Yeasmin, A. K. M. A. Islam, M. G. Rasul and M. A. K. Mian. 2011. Performance of source nursery of pollen parent and CMS lines of Brassica napus L. J. Agric. Sci. 3: 114-122.
[https://doi.org/10.5539/jas.v3n2p114]
-
Swanson, C. A. and R. W. Shuel. 1950. The centrifuge method for measuring nectar yield. Plant Physiol. 25: 513-520.
[https://doi.org/10.1104/pp.25.3.513]
-
Wright, G. A., S. W. Nicolson and S. Shafir. 2018. Nutritional physiology and ecology of honey bees. Annu. Rev. Entomol. 63: 327-344.
[https://doi.org/10.1146/annurev-ento-020117-043423]