국산 및 중국산 아까시꿀 (Robinia pseudoacacia L.)의 대사체 프로파일 분석 및 원산지 구분 가능성 평가
Abstract
This study investigated the metabolite profiles of Korean and Chinese acacia honey using multivariate statistical analysis and evaluated their potential for geographical differentiation. A total of 50 samples, comprising 46 Korean and four Chinese acacia honey samples, were analyzed using UPLC-Q-TOF MS, resulting in the putative identification of 28 metabolites. Partial least squares-discriminant analysis (PLS-DA) showed different distribution patterns between Korean and Chinese acacia honey, with R2X=0.195 and R2Y=0.407, while permutation testing indicated a low risk of model overfitting. Fourteen metabolites with VIP≥0.7 and p≤0.05 were selected as candidate metabolites contributing to differences between the two groups. Among these metabolites, erucamide showed the highest VIP value (3.14), followed by santonin (2.09), and both metabolites showed relatively higher abundance in Korean acacia honey. Sphingolipids, fatty acid amides, and long-chain amines exhibited broader distribution ranges in Korean than in Chinese acacia honey. Heatmap analysis also revealed differences in metabolite patterns between the two groups, consistent with the PLS-DA results. These findings suggest that acacia honey derived from the same floral source may differ in relative metabolite abundance and composition patterns across production regions, and that these characteristics may be used to explore the potential for geographical origin differentiation. Further studies using larger and more balanced sample sets collected from diverse regions and production years are required to develop and validate a robust geographical origin discrimination model based on metabolomic profiles.
Keywords:
Robinia pseudoacacia, Chromatogram, PLS-DA, UPLC-Q-TOF MS, Metabolites서 론
벌꿀은 식물학적 기원 (botanical origin)과 지리적 기원 (geographical origin)에 따라 화학적 조성과 품질 특성이 달라질 수 있다. 그러나 동일한 밀원식물에서 생산된 벌꿀은 외관과 일반적인 이화학적 특성이 유사하여 기존의 품질지표만으로 원산지를 구분하기 어려우며, 원산지 오표시는 벌꿀의 주요 진위성 문제 중 하나로 제기되고 있다 (Zhou et al., 2018; Tsagkaris et al., 2021). 이러한 문제는 벌꿀 유통시장을 교란하고 소비자 신뢰를 저하시킬 수 있으므로, 벌꿀의 지리적 기원을 과학적으로 평가할 수 있는 분석기술의 개발이 필요하다.
아까시나무 (Robinia pseudoacacia L.)는 우리나라의 주요 밀원수종 중 하나이며, 아까시꿀은 국내에서 생산·유통되는 대표적인 단일밀원꿀이다 (Kim et al., 2021; Kim et al., 2022; Oh et al., 2025). 국산과 중국산 아까시꿀은 모두 R. pseudoacacia의 화밀에서 유래하지만, 생산지역의 기후, 토양 및 주변 식생 등의 차이가 벌꿀의 미량성분과 화학적 조성에 반영될 수 있으므로 (Tsagkaris et al., 2021; Park et al., 2025), 이러한 성분 특성을 비교하여 지리적 기원에 따른 차이를 평가할 필요가 있다.
대사체 분석 (metabolomics)은 시료에 존재하는 다양한 저분자 대사물질을 종합적으로 분석하는 방법으로, 지역 환경과 밀원식물 등에 따른 화학적 조성의 차이를 탐색할 수 있다. 특히 LC/MS 기반 대사체 분석은 다양한 대사물질을 동시에 분석할 수 있어 벌꿀의 성분 특성을 비교하고 지리적 기원을 평가하는 데 유용하다 (Zhou et al., 2018; Park et al., 2025). 따라서 본 연구에서는 UPLC-Q-TOF MS와 다변량 통계기법을 이용하여 국산과 중국산 아까시꿀의 대사체 조성을 비교·분석하고, 원산지 간 차이를 나타내는 후보 대사체를 탐색함으로써 두 원산지 간 구분 가능성을 평가하고 향후 원산지 판별 연구를 위한 기초자료를 제공하고자 하였다.
재료 및 방법
1. 재료 및 시약
본 연구는 2024년도에 한국양봉농협에서 수매한 아까시꿀 1점과 국내 17개 지역 (구미, 김제, 김천, 보은, 상주, 세종, 안동, 연천, 예천, 이천, 창녕, 천안, 철원, 파주, 함안, 화성, 화순)의 양봉농가에서 수집한 아까시꿀 45점, 중국산 아까시꿀 4점을 포함하여 총 50점의 시료를 분석하였다. 아까시꿀을 추출하기 위해 아세트산에틸 (ethyl acetate) 및 메탄올 (methanol) (SK chemicals, Seongnam, Korea)을 사용하였다. 대사물질의 정밀 분석은 초고성능 액체크로마토그래피-사중극자 비행시간 질량분석기 (ultra-performance liquid chromatography-quadrupole time-of-flight mass spectrometer, UPLC-Q-TOF MS; XevoTM G2-S, Waters, Milford, MA, USA)를 이용하여 분석하였다.
2. 시료 및 추출 공정
본 연구에 사용한 시료는 국산 아까시꿀 46점과 중국산 아까시꿀 4점이다. 원산지별 아까시꿀 대사체를 비교하기 위해 시료 0.1 g을 정밀하게 취한 후 3차 증류수 500 μL를 혼합한 뒤, 70°C 항온수조에 5분간 가열하여 완전히 용해시켰다. 최적의 추출 효율을 얻기 위해 기존 용매 추출 조건 (Moon et al., 2024)을 바탕으로 아세트산에틸 500 μL를 분주한 뒤 추출액은 1시간 동안 용출하였다. 이후 원심분리기 (Hanil Science, Gimpo, Korea)를 이용하여 14,000 rpm에서 10분간 원심분리하였다. 분리된 상등액 중 300 μL를 회수하여 90°C 항온수조에서 용매를 완전히 건조시켰다. 이후 최종 잔류물을 100% 메탄올 100 μL에 재용해하여 vortexing 한 뒤 동일한 조건 (14,000 rpm, 10 min)으로 원심분리하였다. 이후 분리된 상등액은 vial에 옮겨 UPLC-Q-TOF MS에 주입하여 분석하였다.
3. UPLC-Q-TOF MS 기기 분석 조건
아까시꿀의 대사체의 정밀 분리를 위해 ACQUITY UPLC BEH C18 (2.1 mm×100 mm, 1.7 μm; Waters, Milford, MA, USA)을 탑재한 UPLC-Q-TOF MS 시스템을 운용하였다 (Table 1). 컬럼 온도는 40°C, 유속은 0.35 mL/min으로 고정하였으며, 주입량은 1 μL로 설정하였다. 이동상은 용매 A와 용매 B로 구성하였다. 이온화 방식은 Electrospray ionization (ESI) 양성 이온 모드 (positive mode)로 분석하였다. 데이터 수집 범위는 50~1,500 m/z, scan time 0.2초, capillary 전압은 3 kV, cone 전압은 30 V, desolvation 온도 400°C. desolvation 유속 800 L/h, ion source 온도 100°C 등으로 분석하였다. 질량 측정의 정밀도를 유지하기 위하여 lock mass로 설정하여 30 μL/h의 유속으로 주입하였다. MS/MS 스펙트럼은 collision energy ramp를 10~40 eV로 변화시켜 분석하였다. 검출된 대사물질은 UNIFI (version 1.9.2.045, Waters)을 활용하였으며, 대사물질 동정은 ChemSpider, METLIN, HMDB (Human Metabolome Database), EZmass 데이터베이스 및 표준물질 (Authentic standards)과 비교하여 수행하였다.

Operational parameters of UPLC-Q-TOF MS for analyzing geographical variations in domestic and imported acacia honey
4. 통계분석
수집된 대사체 자료의 다변량 통계분석은 SIMCA-P+version 18 (Umetrics, Umeå, Sweden)을 이용하였다. 국산과 중국산 아까시꿀 간 대사체 패턴의 차이를 평가하기 위해 부분최소제곱 판별분석 (partial least squares-discriminant analysis, PLS-DA)을 수행하였다. 모델의 설명력과 예측력은 R2X, R2Y 및 Q2로 평가하였으며, 순열검정 (permutation test)을 통해 모델의 유효성을 검토하였다. 각 변수의 그룹 구분 기여도는 VIP (variable importance in projection) 값을 이용하여 평가하였다. 동정된 대사체의 상대적 함량 분포는 box plot으로 시각화하였으며, R 소프트웨어를 이용하여 피어슨 상관계수 (Pearson correlation coefficient)를 산출하고 히트맵 (heatmap)으로 나타냈다. 국산과 중국산 시료 간 각 대사체의 상대적 함량 차이는 SPSS 27.0을 이용한 독립표본 t-검정 (independent-samples t-test)으로 평가하였으며, 통계적 유의수준은 p≤0.05로 설정하였다.
결과 및 고찰
1. LC/MS chromatogram을 이용한 국산 및 중국산 아까시꿀의 크로마토그램 패턴 분석
LC/MS를 이용하여 분석한 한국양봉농협 수매 아까시꿀 1점과 중국산 아까시꿀 4점의 크로마토그램을 Fig. 1에 나타내었다. 한국양봉농협 수매 아까시꿀은 국내 여러 지역에서 생산된 벌꿀이 혼합된 시료로, 국산 아까시꿀의 전반적인 성분 특성을 반영하는 대표 시료로 선정하였다. 국산 및 중국산 아까시꿀의 크로마토그램은 전반적으로 유사한 피크 패턴을 나타냈으며, 이는 동일한 밀원식물인 아까시나무에서 유래한 벌꿀로서 주요 성분의 조성이 유사하기 때문으로 판단된다. 그러나 약 4.4~ 8.0분의 머무름 시간 (retention time) 구간에서는 일부 피크의 강도와 분포에서 차이가 관찰되었다. 이러한 결과는 국산 및 중국산 아까시꿀이 전반적으로 유사한 성분 조성을 가지면서도, 일부 대사체의 조성 또는 상대적 함량이 완전히 동일하지 않을 가능성을 시사한다. 벌꿀의 화학적 조성은 주로 당류와 수분으로 구성되지만, 이외에도 비타민, 무기질, 식물 유래 페놀성 화합물, 플라보노이드, 페놀산 등 다양한 생리활성 물질이 함유되어 있으며, 이러한 성분들은 벌꿀의 식물학적·지리적 기원을 구분하는 데 중요한 정보를 제공할 수 있다 (Kim et al., 2018; Tsagkaris et al., 2021). 즉, 동일한 밀원식물에서 생산된 벌꿀이라도 생산 지역의 기후, 토양, 주변 식생 및 채집 환경 등에 따라 다양한 식물 유래 물질이 반영될 수 있으므로, 이러한 차이가 크로마토그래피 패턴에 반영될 가능성이 있다.
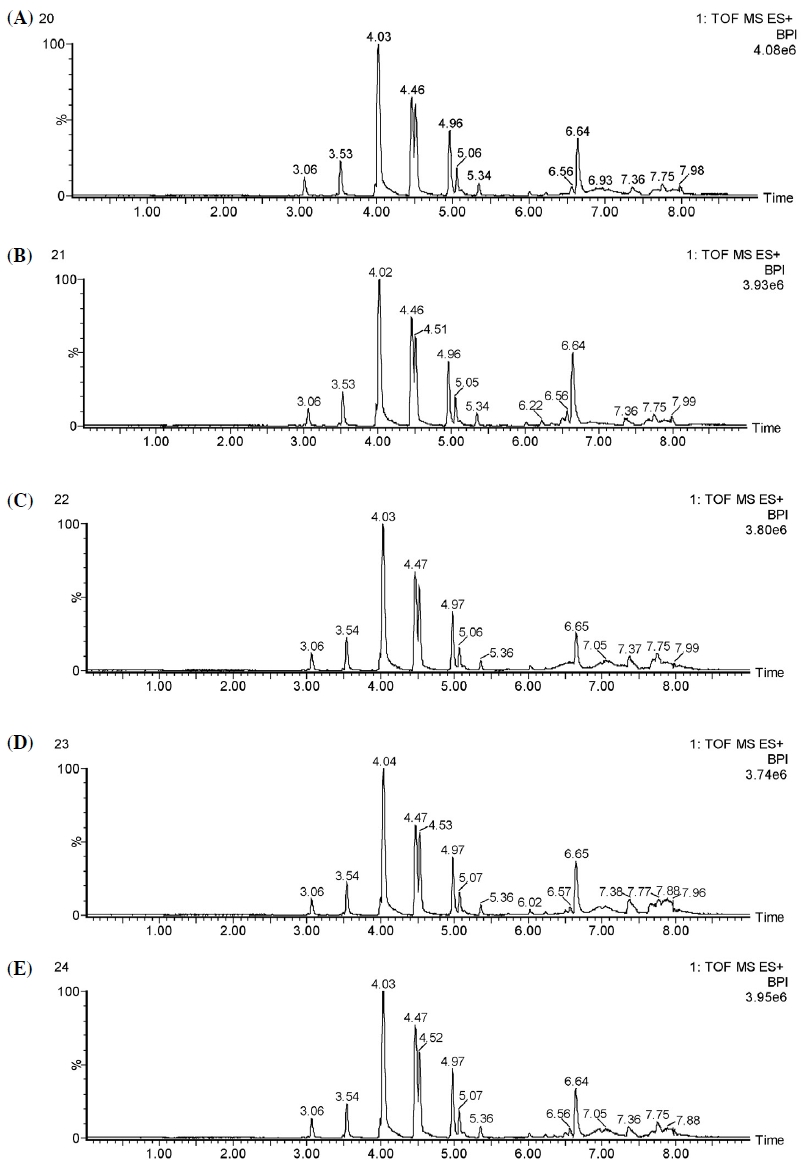
Representative liquid chromatography/mass spectrometry (LC/MS) chromatograms of domestic (A) and imported (B~E) acacia honey. The x-axis indicates retention time (min), and the y-axis shows normalized intensity.
2. PLS-DA 분석을 통한 국산 및 중국산 아까시꿀의 대사체 차이 분석
국산 및 중국산 아까시꿀의 대사체 조성 차이를 비교하기 위해 PLS-DA를 수행하였다 (Fig. 2). 분석 시료는 국산 아까시꿀 46점과 중국산 아까시꿀 4점을 사용하였다. PLS-DA score plot에서 첫 번째와 두 번째 잠재변수인 t1과 t2는 각각 전체 변이의 10.3%와 9.19%를 설명하였다 (Fig. 2A). PLS-DA 모델링을 수행한 결과, 중국산 아까시꿀은 주로 score plot의 아래쪽에 분포한 반면 국산 아까시꿀은 상대적으로 위쪽에 분포하여 두 그룹 간 서로 다른 분포 경향을 나타냈다. PLS-DA 모델의 적합도를 평가한 결과, R2X와 R2Y는 각각 0.195와 0.407로 나타났으며, Q2는 0.277로 확인되었다. R2X는 전체 X 변수의 설명력을, R2Y는 그룹 정보에 대한 모델의 설명력을 나타내며, Q2는 모델의 예측력을 나타낸다. 본 모델의 값은 R2Y가 0.407로 나타나 두 원산지 그룹 간 서로 다른 분포 경향을 보이는 것을 확인할 수 있다. 그러나 Q2 값은 0.277로 높은 예측력을 나타내지는 않으므로, 높은 정확도로 분류할 수 있는 완성된 판별모델을 제시하기보다, 원산지별 대사체 조성에 기반한 차별적인 패턴이 존재한다는 가능성을 나타낸다. 모델의 과적합 여부를 평가하기 위해 교차검증 (permutation test)하였다 (Fig. 2B). 그 결과, permutation을 통해 생성된 모델의 R2 및 Q2 값이 원래 모델보다 낮았으며, Q2 절편 또한 음의 값을 나타내어 모델의 과적합 위험이 낮은 것으로 확인되었다. 이는 본 연구에서 확인된 국산과 중국산의 대사체 분포 차이가 일정한 생물학적·화학적 정보를 반영하고 있을 가능성을 뒷받침한다. 이상의 결과를 종합하면, 국산 및 중국산 아까시꿀은 PLS-DA 상에서 대사체 조성에 따른 서로 다른 분포 특성을 나타내는 것으로 확인되었다. 이는 국내 지역별 아까시꿀의 대사체 연구에서도 서로 다른 국내 권역 간에도 대사체 조성의 차이가 확인되었다는 결과와도 일치한다 (Park et al., 2025). 그러나 본 연구는 국산 46점과 중국산 4점으로 원산지별 시료 수가 불균형하며, 특히 제한된 중국산 시료는 실제 모집단의 대사체 다양성을 충분히 반영하지 못할 가능성이 있다. 이러한 표본 불균형은 PLS-DA의 그룹 분리 양상에도 영향을 줄 수 있으므로, 본 연구 결과는 국산과 중국산 아까시꿀의 대사체 조성 차이와 원산지 구분 가능성을 보여주는 탐색적 결과로 해석할 필요가 있다. 따라서 향후 원산지별 시료 수를 균형 있게 확대하여 분석 결과의 재현성과 원산지 구분 가능성을 추가로 검증할 필요가 있다.
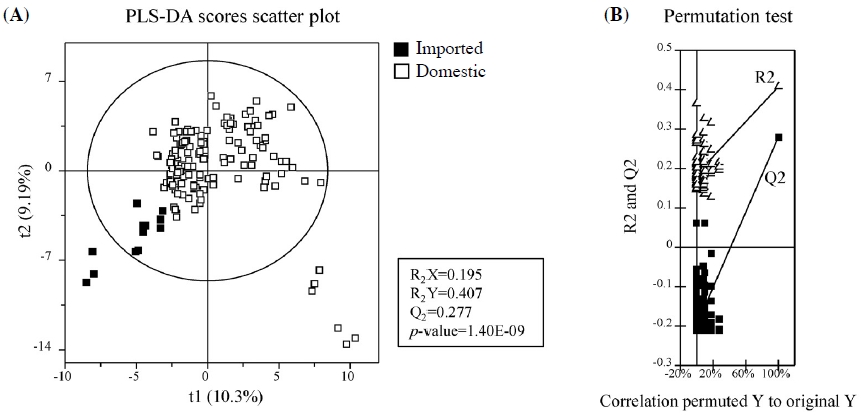
Multivariate PLS-DA modeling for origin discrimination of acacia honey: (A) score plot and (B) cross-validation via permutation test.
3. UPLC-Q-TOF MS 기반 국산 및 중국산 아까시꿀의 후보 대사체 탐색
분석 시료는 국산 아까시꿀 46점과 중국산 아까시꿀 4점을 사용하였다. Exact mass 값과 MS fragment 패턴을 기준으로 주요 대사물질을 분석한 결과 총 28종의 대사물질이 잠정적으로 동정되었다 (Table 2). Exact mass는 양성 이온화 모드에서 proton이 첨가된 [M+H]+ 형태의 정확 질량을 나타내며, MS/MS fragment는 precursor ion의 fragmentation에 의해 생성된 주요 product ion을 의미한다 (Park et al., 2025). 국산과 중국산 아까시꿀의 원산지 판별에 기여하는 후보 대사체를 선별하기 위해 variable important in projection (VIP) 값과 통계적 유의성을 평가하였다. VIP는 PLS-DA 모델에서 각 변수가 그룹 간 분리에 기여하는 상대적 중요도를 나타내는 지표로, 본 연구에서는 VIP≥0.7 및 p-value≤0.05를 기준으로 총 14종의 후보 대사체를 최종 선별하였다. 선별한 대사체는 2-amino-2-[(octyloxy)methyl]-1,3-propanediol, tricoumaroylspermidine, santonin, rhamnetin/methoxyluteolin/methoxyquercetin, tetradecasphinganine, tetradecaphytosphingosine, hexadecasphinganine, phytosphingosine, stearyldiethanolamine, octadecylamine, linoleamide, N-[2-(1-Cyclohexen-1-yl)ethyl]tetradecanamide, palmitamide/diethyllauramide 및 erucamide였다. 선별된 후보 대사체는 화학적 특성에 따라 스핑고지질 (sphingolipid) 관련 물질, 지방산 아마이드 (fatty acid amide), 장쇄 아민 (long-chain amine), 플라보노이드 및 기타 대사체 등으로 구분되었다. 스핑고지질은 식물 세포막을 구성하는 주요 지질 성분으로, 화분에서도 다양한 스핑고지질이 존재하는 것으로 보고되어 있다 (Yang et al., 2025).
Candidate marker metabolites contributing to origin differentiation of acacia honey determined by UPLC-Q-TOF MS
식물 sphingolipid는 세포막의 주요 구성성분으로서 막의 구조와 유동성 유지에 관여할 뿐만 아니라, 식물의 생장 및 발달 등에 관여하는 것으로 알려져있다 (Huby et al., 2020; Mamode Cassim et al., 2020). 따라서 tetradecasphinganine, tetradecaphytosphingosine, hexade casphinga-nine 및 phytosphingosine 성분은 단순히 벌꿀에 포함된 지질 성분의 차이를 의미하는 것뿐만 아니라, 해당 성분이 유래한 식물 또는 화분의 생육환경과 관련된 대사 특징이 일부 반영되었을 가능성을 고려할 필요가 있다. 다만 현재 연구에서는 해당 sphingolipid가 아까시나무 자체에서 유래한 것인지, 주변 식생 또는 화분으로부터 유입된 것인지 직접적으로 확인하지 않았으므로, 이를 특정 원산지의 직접적인 생물학적 마커로 해석하는 것은 적절하지 않다. 플라보노이드 계열 물질인 rhamnetin/methoxyluteolin/methoxyquercetin은 식물 유래 2차 대사산물로, 화밀 및 화분을 통해 벌꿀에 유입될 수 있는 것으로 알려져 있다 (Kenjerić et al., 2007). 실제로 아까시꿀에는 다양한 플라보노이드가 존재하는 것으로 보고되어 있으며, 이는 밀원식물의 종류 및 생산환경과 관련될 수 있다 (Kenjerić et al., 2007; Matkovits et al., 2023). 따라서 본 연구에서 확인된 14종의 후보 대사체가 서로 다른 화학적 특성에 따라 구분된다는 점은 밀원식물의 생육환경과 주변 식생, 화밀 및 화분의 조성, 지역별 환경조건이 복합적으로 작용하여 형성된 결과로 해석하는 것이 타당하다. 이러한 결과는 특정 단일 대사체만을 원산지 판별 지표로 활용하기보다는 여러 후보 대사체의 상대적 조성을 종합적으로 고려하는 것이 유용할 수 있다는 기존 연구의 방향과 일치한다 (Tsagkaris et al., 2021).
4. Box plot을 활용하여 국산 및 중국산 아까시꿀의 주요 대사체 함량 비교 분석
Table 2에서 선정된 주요 후보 대사체 14종의 원산지별 상대적 함량 분포를 비교하기 위해 box plot을 수행하였다 (Fig. 3). 분석 시료는 국산 아까시꿀 46점과 중국산 아까시꿀 4점을 사용하였다. 분석 결과, 일부 후보 대사체에서 국산과 중국산 아까시꿀 간 상대적 함량과 분포 양상의 차이가 관찰되었다. 후보 대사체 중 erucamide가 가장 높은 VIP 값 (3.14)을 나타냈으며, santonin은 두 번째로 높은 VIP 값 (2.09)을 나타냈다. 두 대사체 모두 국산 아까시꿀에서 상대적으로 높은 함량 분포를 보여 원산지별 아까시꿀 간의 차이에 기여하는 주요 후보 대사체로 확인되었다. Erucamide는 애기장대, 밀, 벼, 옥수수 등 다양한 쌍자엽 및 단자엽 식물에서 생성되는 지방산 아마이드로 보고되어 있으며 (Miao et al., 2025), santonin은 주로 쑥속 (Artemisia) 식물에서 생성되는 천연 sesquiterpene lactone으로 알려져 있다 (Yang et al., 2024). 스핑고지질 관련 물질인 tetradecasphinganine, tetradecaphytosphingosine, hexadecasphinganine, phytosphingosine은 국산 아까시꿀에서 중국산 아까시꿀보다 상대적으로 넓은 분포 범위를 나타냈다. 또한 지방산 아마이드 계열인 linoleamide도 국산 아까시꿀에서 상대적으로 넓은 분포 범위를 보였다. 플라보노이드 계열인 rhamnetin/methoxyluteolin/methoxyquercetin은 중국산 아까시꿀에서는 거의 검출되지 않은 반면, 일부 국산 아까시꿀에서는 상대적으로 높은 수준으로 검출되었다. 본 연구에서 검출된 이들 성분의 기원을 해석할 때에는 주변 식생 등 식물학적 요인의 영향을 고려할 필요가 있다 (Mamode Cassim et al., 2020; Yang et al., 2024). 다만, 관찰된 상대적 함량과 분포 양상에는 국산 46점과 중국산 4점이라는 표본 수의 차이가 영향을 미쳤을 수 있으므로, 이를 원산지에 따른 일반적인 생물학적 특성으로 해석하는 데에는 주의가 필요하다. 또한, 이들 성분의 기원을 확인하기 위해서는 DNA 메타바코딩 (DNA metabarcoding) 또는 화분 분석과 생산지역의 식생 조사를 병행할 필요가 있다 (Matkovits et al., 2023).
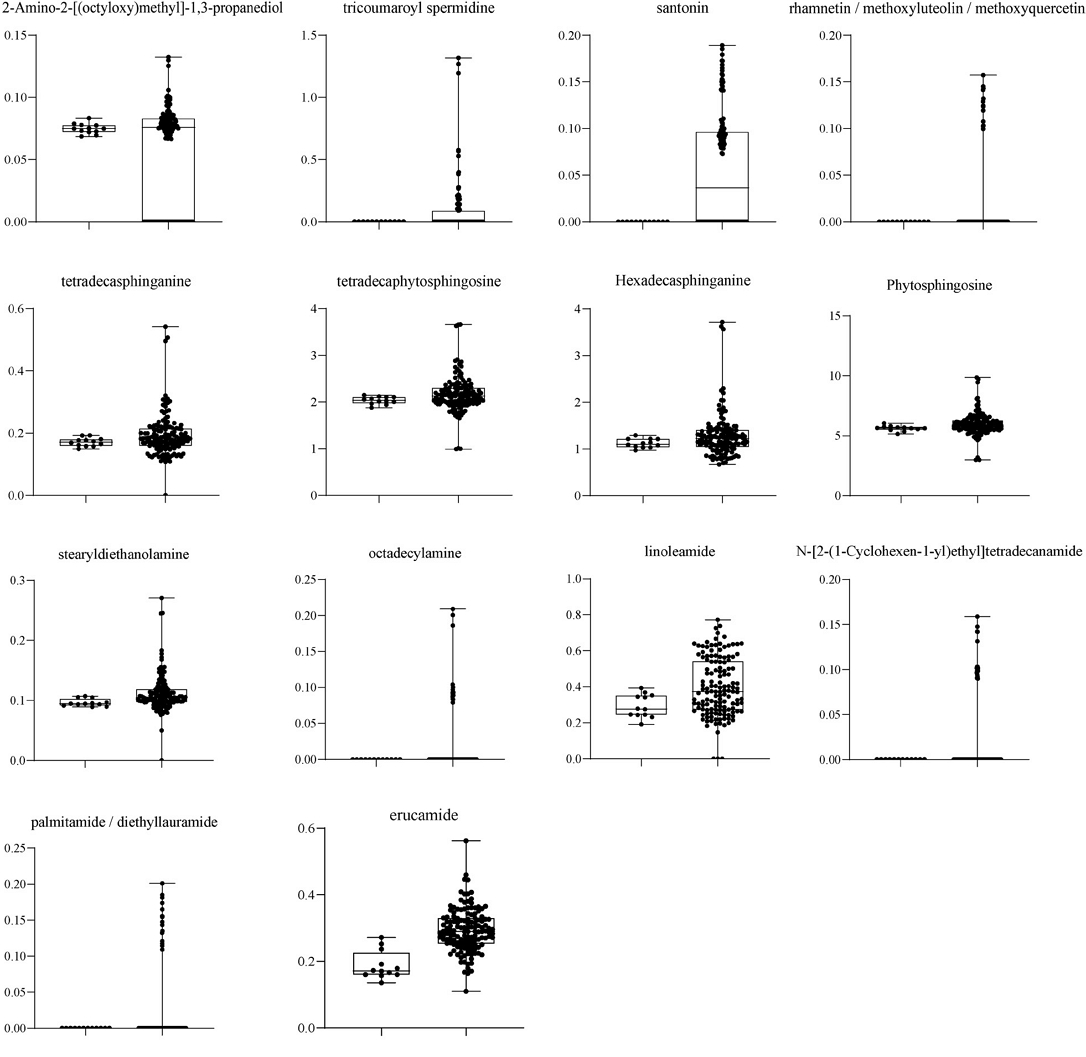
Comparison of relative metabolite levels between domestic and imported acacia honey groups. The horizontal axis represents geographical origin, and the vertical axis represents peak intensity values normalized by UPLC-Q-TOF MS.
5. Heatmap을 활용하여 국산 및 중국산 아까시꿀의 대사체 군집 패턴 분석
Box plot 결과를 바탕으로 특정 대사체 군집에 따른 원산지별 대사물질을 비교하기 위해 Heatmap으로 시각화하였다 (Fig. 4). 분석 시료는 국산 아까시꿀 46점과 중국산 아까시꿀 4점을 사용하였다. 그 결과, 국산 및 중국산 아까시꿀 간에 뚜렷하게 구분되어, 이는 PLS-DA 결과에서 확인된 두 집단 간의 분리를 뒷받침하였다. 국산 및 중국산의 대사물질 상관관계를 비교한 결과, 먼저 개별 대사체인 santonin과 erucamide은 국산 아까시꿀에서 상대적으로 높은 함량을 나타냈다. 마찬가지로 지방산 아마이드 계열인 linoleamide과 플라보노이드 계열인 rhamnetin/methoxyluteolin/methoxyquercetin에서도 상대적으로 높은 함량을 나타냈다. 반면에 스핑고지질 계열인 tetradecasphinganine, tetradecaphytosphingosine, hexadecasphinganine, C16 phytosphingosine fragment, phytosphingosine은 일부 지역을 제외하고 상대적으로 낮은 함량을 나타냈다. 마지막으로 중국산 아까시꿀에서 2-Amino-2-[(octyloxy)methyl]-1,3-propanediol 성분을 제외하고 낮은 함량을 나타냈다. 이를 통해 국산 및 중국산 아까시꿀의 대사체 조성 및 패턴을 비교하기 위해 특정 단일 대사체의 차이보다는 여러 대사체가 형성하는 상대적 분포 및 상관관계를 반영할 가능성을 시사한다. 국산 아까시꿀에서 하나의 균일한 군집으로만 구성되지 않고 일부 대사체에서 지역별 차이를 나타냈는데, 이는 국내 아까시꿀 자체가 생산 지역의 환경적 특성을 어느 정도 반영할 수 있음을 보여준다 (Park et al., 2025). 한편으로는 국산 아까시꿀 범주 안에서도 지역 및 연도에 따른 변이가 크다면, 제한된 시료로 구축된 판별모델은 새로운 시료에 적용했을 때 정확도가 낮아질 수 있다. 특히 본 연구에서 확인된 식품 sphingolipid는 세포막의 구조적 역할 뿐만 아니라 환경 및 발달 신호에 대한 반응에도 관여하는 것으로 알려져 있으므로 (Huby et al., 2020; Mamode Cassim et al., 2020), 생산 지역의 기후 및 생육조건에 따른 식물의 대사 상태가 결과에 일부 반영되었을 가능성이 있다. 그러나 이러한 해석은 현재 연구에서 직접 검증된 것은 아니므로, 향후 아까시나무의 화밀 및 화분과 벌꿀을 연계하여 기상 및 토양환경 자료와 통합하여 검증할 필요가 있다. 따라서 향후 연구에서는 다양한 생산지역과 연도의 시료를 활용한 추가 연구가 이루어져야 할 것으로 판단된다.
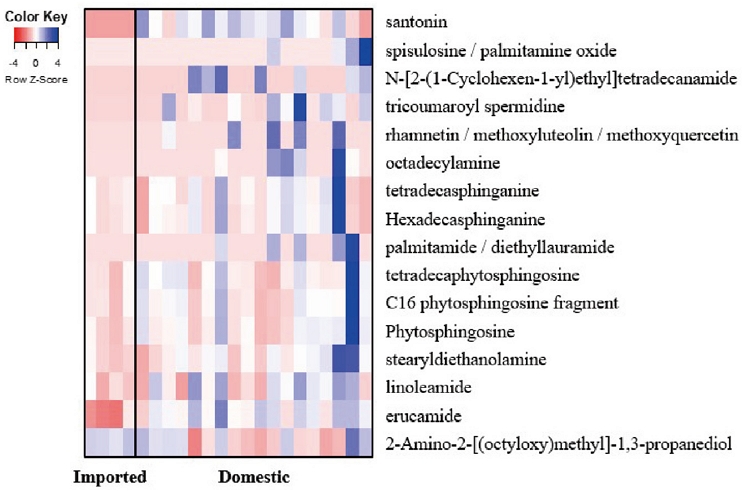
Hierarchical cluster heatmap illustrating differential metabolite patterns across domestic and imported acacia honey samples. The order of samples from left to right is as follows: Imported acacia honey (B, C, D, E), Domestic acacia honey (Yangbong, Gumi, Gimje, Gimcheon, Boeun, Sangju, Sejong, Andong, Yeoncheon, Yecheon, Icheon, Changnyeong, Cheonan, Cheorwon, Paju, Haman, Hwaseong, Hwasun).
적 요
본 연구에서는 국산 및 중국산 아까시꿀의 대사체 조성 차이를 비교하고 원산지 판별에 활용 가능한 후보 대사체를 탐색하기 위해 UPLC-Q-TOF MS 기반 대사체 분석과 다변량 통계분석을 수행하였다. 국산 및 중국산 아까시꿀의 크로마토그램은 전반적으로 유사한 피크 패턴을 나타냈으나, 일부 머무름 시간 구간에서 피크의 강도와 분포에 차이가 관찰되었다. Exact mass와 MS/MS fragment pattern을 기반으로 총 28종의 대사물질을 동정하였으며, PLS-DA 분석 결과 국산과 중국산 시료는 서로 다른 분포 경향을 나타냈다. PLS-DA 모델의 R2X, R2Y 및 Q2 값은 각각 0.195, 0.407 및 0.277로 나타났다. 원산지 간 차이에 기여하는 후보 대사체를 선별하기 위해 VIP≥0.7 및 p-value≤0.05를 기준으로 총 14종의 후보 대사체를 선정하였다. 이 중 santonin은 가장 높은 VIP 값을 나타냈으며, 국산 아까시꿀에서 상대적으로 높은 수준을 보였다. 또한 tetradecasphinganine, tetradecaphytosphingosine, hexadecasphinganine, phytosphingosine 등의 스핑고지질 관련 물질과 linoleamide는 국산 아까시꿀에서 상대적으로 넓은 분포 범위를 나타냈다. Heatmap 분석에서도 국산과 중국산 아까시꿀은 후보 대사체의 상대적 분포에서 서로 다른 양상을 나타냈으며, santonin, erucamide, linoleamide 및 일부 플라보노이드 계열 물질은 일부 국산 시료에서 상대적으로 높은 수준을 보였다. 이러한 결과는 특정 단일 대사체보다는 여러 후보 대사체의 상대적 분포 패턴을 종합적으로 고려하는 것이 국산 및 중국산 아까시꿀의 원산지 차이를 평가하는 데 유용할 가능성을 보여준다. 본 연구에서 확인된 대사체 분포 특성은 향후 아까시꿀의 원산지 판별 가능성을 검토하기 위한 기초자료로 활용될 수 있으며, 다양한 생산지역과 연도의 시료를 활용한 추가 연구가 필요할 것으로 판단된다.
Acknowledgments
본 연구는 농촌진흥청 연구사업 (과제번호: PJ01745702)의 지원에 의하여 수행되었습니다. 또한 본 연구는 2025년도 농촌진흥청 국립농업과학원 전문연구원 과정 지원사업에 의하여 수행된 것으로 이에 감사드립니다.
References
-
Huby, E., J. A. Napier, F. Baillieul, L. V. Michaelson and S. Dhondt-Cordelier. 2020. Sphingolipids: towards an integrated view of metabolism during the plant stress response. New Phytologist. 225: 659-670.
[https://doi.org/10.1111/nph.15997]

-
Kenjerić, D., M. L. Mandić, L. Primorac, D. Bubalo and A. Perl. 2007. Flavonoid profile of Robinia honeys produced in Croatia. Food Chem. 102: 683-690.
[https://doi.org/10.1016/j.foodchem.2006.05.055]
-
Kim, S. G., S. O. Woo, K. W. Bang, H. R. Jang and S. M. Han. 2018. Chemical composition of drone pupa of Apis mellifera and its nutritional evaluation. J. Apic. 33: 17-23.
[https://doi.org/10.17519/apiculture.2018.04.33.1.17]
- Kim, S. K., T. K. Kim, S. H. Yoon, K. C. Jang, H. M. Lim, W. Y. Lee, M. S. Won, J. H. Lim and H. S. Kim. 2021. Recent changes in bloom dates of Robinia pseudoacacia and bloom date predictions using a process-based model in South Korea. J. Korean Soc. For. Sci. 110: 322-340.
- Kim, S. R., J. E. Song, C. H. Park, S. H. Min, S. H. Hong, J. H. Yun and Y. M. Son. 2022. Development of diameter distribution change and site index in a stand of Robinia pseudoacacia, a major honey plant. J. Korean Soc. For. Sci. 111: 311-318.
-
Mamode Cassim, A., M. Grison, Y. Ito, F. Simon-Plas, S. Mongrand and Y. Boutté. 2020. Sphingolipids in plants: a guidebook on their function in membrane architecture, cellular processes, and environmental or developmental responses. FEBS letters. 594: 3719-3738.
[https://doi.org/10.1002/1873-3468.13987]
-
Matkovits, A., K. Nagy, M. Fodor and Z. Jókai. 2023. Analysis of polyphenolic components of Hungarian acacia (Robinia pseudoacacia) honey; method development, statistical evaluation. J. Food Comp. Anal. 120: 105336.
[https://doi.org/10.1016/j.jfca.2023.105336]
-
Miao, P., H. Wang, W. Wang, Z. Wang, H. Ke, H. Cheng, J. Ni, J. Liang, Y. F. Yao, J. Wang, J. M. Zhou and X. Lei. 2025. A widespread plant defense compound disarms bacterial type III injectisome assembly. Science 387: eads0377.
[https://doi.org/10.1126/science.ads0377]
-
Moon, S. W., S. O. Woo, H. M. Choi, S. K. Kim, S. M. Kim, M. S. Lee and H. Y. Kim. 2024. Comparative analysis of false acacia (Robinia pseudoacacia) honey from different origins through optimization of preparation. J. Apic. 39: 239-244.
[https://doi.org/10.17519/apiculture.2024.09.39.3.239]
-
Oh, S. J., K. S. Shim and J. H. Park. 2025. Predicting blooming and fall dates for Robinia pseudoacacia using machine learning. J. Apic. 40: 57-64.
[https://doi.org/10.17519/apiculture.2025.04.40.1.57]
-
Park, S. W., H. Y. Kim, S. O. Woo, H. M. Choi, S. K. Kim, S. M. Kim, S. G. Lee, M. S. Lee, Y. G. Son and P. R. Im. 2025. Metabolomic analysis to characterize regional differences in korean acacia honey (Robinia pseudoacacia). J. Apic. 40: 271-280.
[https://doi.org/10.17519/apiculture.2025.09.40.3.271]
-
Tsagkaris, A. S., G. A. Koulis, G. P. Danezis, I. Martakos, M. Dasenaki, C. A. Georgiou and N. S. Thomaidis. 2021. Honey authenticity: analytical techniques, state of the art and challenges. RSC Adv. 11: 11273-11294.
[https://doi.org/10.1039/D1RA00069A]
-
Yang, C., Y. M. Lai and N. Yao. 2025. Plant sphingolipids: Subcellular distributions and functions. Curr. Opin. Plant Biol. 85: 102704.
[https://doi.org/10.1016/j.pbi.2025.102704]
-
Yang, R., Z. Xue, M. Zhang, X. Li and Y. Guo. 2024. Nonfood natural sesquiterpene lactone α-santonin: Chemistry and biology. Ind. Crops Prod. 220: 119169.
[https://doi.org/10.1016/j.indcrop.2024.119169]
-
Zhou, X., M. P. Taylor, H. Salouros and S. Prasad. 2018. Authenticity and geographic origin of global honeys determined using carbon isotope ratios and trace elements. Sci. Rep. 8: 14639.
[https://doi.org/10.1038/s41598-018-32764-w]