국내 아까시꿀의 세균군집 구조와 연도 간 변동 특성
Abstract
Bacterial communities in honey can be influenced by production sites and surrounding environmental conditions; however, little is known about their temporal variation within the same production sites. In this study, bacterial communities in black locust honey produced at the same five apiaries in 2024 and 2025 were compared using 16S rRNA gene-based metabarcoding. Alpha diversity analysis showed that observed ASVs increased at all five apiaries in 2025, whereas the Shannon diversity index decreased at four apiaries, except Hwasun, indicating different patterns of change in bacterial richness and diversity. Apilactobacillus kunkeei was one of the predominant bacterial species in both years, and its relative abundance increased at four of the five apiaries, although the magnitude and direction of change varied among apiaries. Principal coordinate analysis (PCoA) based on Bray-Curtis dissimilarity showed shifts in bacterial community composition between the two years within the same apiaries; however, the overall effect of year was not statistically significant in PERMANOVA accounting for apiary (R2=0.247, P=0.125). Bray-Curtis dissimilarities between the two years within individual apiaries ranged from 0.320 to 0.864, indicating varying degrees of temporal change among production sites. These findings indicate that bacterial communities in black locust honey may vary over time even within the same production sites, although the magnitude and direction of these changes were not consistent across sites. However, because samples from 2024 and 2025 were processed in separate experimental batches, the observed temporal differences could not be fully distinguished from potential batch effects. Therefore, when bacterial communities in honey are considered as potential biological indicators of geographical origin or production environment, temporal stability within the same production site should also be taken into consideration.
Keywords:
Black locust honey, Bacterial community, 16S rRNA gene, DNA metabarcoding, Temporal variation서 론
꿀은 높은 당 농도와 낮은 수분활성, 산성 조건 및 다양한 항균성 성분으로 인해 대부분의 미생물이 증식하기 어려운 환경이지만, 다양한 세균과 진균을 포함하는 미생물군집이 존재하는 것으로 알려져 있다 (Luca et al., 2024). 꿀에서 검출되는 미생물은 꽃과 화밀 등의 외부 환경뿐만 아니라 꿀벌의 소화관과 벌통 환경 등 다양한 경로와 연관될 수 있다 (Anderson et al., 2013; Luca et al., 2024). 최근에는 DNA metabarcoding을 이용하여 꿀에 존재하는 미생물군집의 구성과 다양성 및 이에 영향을 미치는 요인을 분석하는 연구가 이루어지고 있으며, 꿀의 종류와 이화학적 특성이 세균 및 진균군집의 다양성과 관련될 수 있음이 보고되었다 (Xiong et al., 2023).
꿀의 미생물군집은 식물학적·지리적 기원에 따라 서로 다른 조성을 나타낼 수 있으며, 이러한 특성을 꿀의 기원과 관련된 생물학적 정보로 활용하려는 연구가 이루어지고 있다. DNA metabarcoding을 이용한 연구에서는 서로 다른 지리적 기원의 꿀에서 세균군집 조성의 차이가 관찰되었으며 (Wirta et al., 2021), Pathiraja et al. (2023)은 16S rRNA gene을 포함한 eDNA metabarcoding 분석을 통해 꿀의 지리적 기원에 따라 bacterial DNA composition이 달라질 수 있음을 보고하였다. 또한 세균 유래 정보가 식물 및 꿀벌 유래 DNA와 함께 꿀의 기원을 추적하는 데 활용될 가능성을 제시하였다. 따라서 꿀의 세균군집은 생산 지역 및 생산 환경과 관련된 생물학적 정보를 포함할 가능성이 있다.
그러나 특정 시점에서 관찰된 미생물군집의 지역적 차이가 서로 다른 시기에도 지속되는 특성인지는 별도로 검토할 필요가 있다. 꿀의 미생물군집은 단일한 기원에 의해 형성되는 것이 아니라 꽃과 화밀, 꿀벌 및 벌통 환경 등 다양한 요인과 연관될 수 있으며 (Luca et al., 2024; Tiusanen et al., 2024), 이러한 요인들은 시간에 따라 변화할 가능성이 있다. 실제로 꿀벌의 미생물군집에서는 지리적 요인과 함께 계절 또는 채취 시기에 따른 변화가 보고되어 왔다 (Almeida et al., 2023). Tiusanen et al. (2024)은 동일한 여름 동안 세 시점에서 수집한 꿀벌, 꿀 및 꽃의 미생물군집을 분석하여 조사 지역과 채취 시기가 세균 및 진균군집의 조성에 영향을 미칠 수 있음을 보고하였다. 따라서 꿀에서 관찰되는 미생물군집의 지역적 패턴을 해석하거나 이를 지역 관련 생물학적 정보로 활용하기 위해서는 공간적 차이와 함께 시간적 변동성을 고려할 필요가 있다.
이에 본 연구에서는 2024년과 2025년에 국내 5개 지역의 동일 양봉장에서 수집된 아까시꿀을 대상으로 16S rRNA gene 기반 세균군집 분석을 수행하였다. 세균군집의 조성과 다양성을 비교하고, 동일 양봉장에서 두 시점 사이에 나타나는 군집 구조의 변화를 분석하였다. 이를 통해 국산 아까시꿀의 세균군집에서 나타나는 연도 간 변동 특성을 확인하고, 동일 생산지에서 세균군집의 시간적 변동 가능성을 평가하고자 하였다.
재료 및 방법
1. 아까시꿀 시료
본 연구에서는 2024년과 2025년에 국내에서 생산된 아까시꿀 중 두 연도에 공통으로 확보된 5개 지역의 시료를 분석하였다. 조사 지역은 안동 (A), 철원 (CH), 화순 (HW), 이천 (L) 및 창녕 (N)이었으며, 2024년과 2025년 시료는 아까시나무 (Robinia pseudoacacia L.)의 개화 및 채밀 시기에 동일한 양봉장에서 농가가 채밀·수집한 아까시꿀을 현장에서 직접 채집하였다. 두 연도의 시료는 동일한 방식으로 채집하였으며, 분석 전까지 직사광선을 피하여 상온 보관하였다.
2. DNA 추출 및 16S rRNA 유전자 분석
각 연도별 시료는 채취 후 바로 DNA를 추출하고 PCR 및 염기서열 분석을 순차적으로 수행하였다. 이를 위해 각 꿀 시료 10 g에 시료 부피의 5배에 해당하는 GI buffer (5 M guanidine hydrochloride containing 30% isopropanol)를 첨가하여 혼합한 후 13,000 rpm으로 30분간 원심분리하였다. 원심분리 후 화분을 포함한 침전물과 상층액을 분리하였으며, 침전물로부터의 DNA는 DNeasy Plant Mini Kit (Qiagen, Hilden, Germany)를 이용하여 추출하였다. 상층액에 존재하는 수용성 DNA는 QIAquick PCR Purification Kit (Qiagen)에 포함된 affinity column을 이용하여 별도로 회수하였다 (Kim et al., 2021). 꿀 시료로부터 DNA 회수량을 높이고자 침전물과 상층액에서 각각 회수한 DNA를 혼합하여 하나의 주형으로 사용하였다.
세균군집 분석을 위해 16S rRNA 유전자의 V3-V4 범용프라이머로 Illumina adapter overhang sequence가 포함된 341F (5ʹ-CCTACGGGNGGCWGCAG-3ʹ)와 805R (5ʹ-GACTACHVGGGTATCTAATCC-3ʹ) primer를 이용하여 증폭하였다. PCR 반응에는 5 ng의 template DNA와 최종농도 각각 500 nM의 forward 및 reverse primer를 사용하였으며, Herculase II Fusion DNA Polymerase (Agilent Technologies, Santa Clara, CA, USA)를 이용하였다. PCR은 95℃에서 3분간 초기 변성한 후 95℃ 30초, 55℃ 30초 및 72℃ 30초의 조건으로 25 cycles을 수행하고, 72℃에서 5분간 최종 신장하였다. PCR 분석 시 negative control을 함께 수행하였으며, 이에 대한 증폭산물은 확인되지 않았다.
PCR 산물은 정제한 후 Nextera XT index primers를 이용하여 index PCR을 수행하였다. Index PCR은 98℃에서 1분간 초기 변성한 후 98℃ 15초, 55℃ 15초 및 72℃ 30초의 조건으로 10 cycles을 수행하고, 72℃에서 3분간 최종 신장하였다. 최종 library의 농도와 크기를 확인한 후 Illumina MiSeq platform (Illumina, San Diego, CA, USA)을 이용하여 paired-end sequencing을 수행하였다.
3. 염기서열 및 세균군집 분석
생성된 sequencing reads는 Trimmomatic v0.39 (Bolger et al., 2014)를 이용하여 adapter 및 low-quality sequences를 제거하였다. Trimming에는 LEADING : 3, TRAILING : 3, SLIDINGWINDOW : 4 : 20 및 MINLEN : 50의 조건을 적용하였다. 이후 QIIME 2 v2024.2.0 (Bolyen et al., 2019) 환경에서 DADA2 v1.36.0 (Callahan et al., 2016)을 이용하여 denoising과 paired-end read merging을 수행하고 amplicon sequence variants (ASVs)를 생성하였다. Forward 및 reverse reads의 truncation length는 각각 270 bp와 210 bp로 설정하였다. Chimera sequences는 VSEARCH의 uchime-denovo를 이용하여 제거하였으며, 400 bp 이하의 sequences와 식물 plastid 유래 sequences를 filtering 과정에서 제거하였다.
ASV sequences의 taxonomic assignment는 NCBI RefSeq 16S database (O’Leary et al., 2016)를 기준으로 BLASTN v2.17.0+를 이용하여 수행하였다. Taxonomic assignment에는 sequence identity≥80%, query coverage≥80% 및 E-value≤0.001의 기준을 적용하였으며, 각 query에 대해 최상위 hit를 이용하여 분류하였다. 이를 바탕으로 각 시료의 세균 taxa별 상대풍부도를 산출하였다.
4. 통계 분석
Alpha diversity는 Observed ASVs와 Shannon diversity index를 이용하여 평가하였다. Beta diversity는 Bray-Curtis 비유사도를 기반으로 principal coordinate analysis (PCoA)를 수행하여 세균군집 구조를 비교하였다. 동일 양봉장의 연도 간 세균군집 변동 정도는 2024년과 2025년 시료 간 Bray-Curtis 비유사도를 이용하여 평가하였다. 연도에 따른 전체 세균군집 조성의 차이는 양봉장을 고려한 PERMANOVA로 검정하였으며, 통계적 유의수준은 P<.05로 설정하였다.
결 과
1. 세균군집의 alpha diversity
2024년과 2025년에 채취한 아까시꿀의 세균군집 다양성을 비교하기 위해 각 시료는 3반복 분석하였으며 평균값으로 Observed ASVs와 Shannon diversity index를 비교하였다 (Fig. 1). Observed ASVs는 조사된 5개 양봉장 모두에서 2024년보다 2025년에 증가하는 양상을 나타냈다. 특히 화순 (HW)과 창녕은 각각 941.3에서 2,090.3으로, 1,034.0에서 2,161.3으로 증가하여 다른 지역에 비해 상대적으로 큰 변화를 보였다 (Fig. 1A).
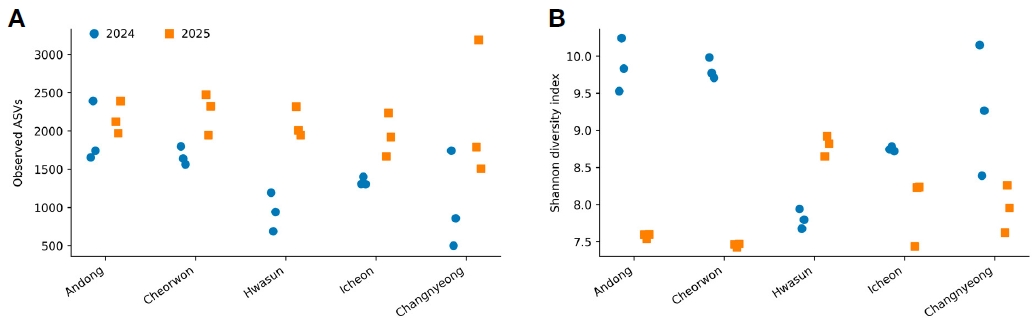
Alpha diversity of bacterial communities in black locust honey collected from five apiaries in 2024 and 2025. (A) Observed amplicon sequence variants (ASVs) and (B) Shannon diversity index. A, Andong; CH, Cheorwon; HW, Hwasun; L, Icheon; N, Changnyeong.
Shannon diversity index는 화순 (HW)을 제외한 4개 양봉장에서 2024년보다 2025년에 감소하는 양상을 나타냈다. 안동 (A)에서는 평균 9.87에서 7.58로, 철원 (CH)에서는 9.82에서 7.45로 감소하였으며, 반면 화순에서는 7.81에서 8.80으로 증가하였다 (Fig. 1B).
2. 세균군집 조성
2024년과 2025년 아까시꿀의 세균군집 조성을 비교한 결과, 주요 세균 taxa의 구성과 상대풍부도는 양봉장 및 연도에 따라 서로 다른 양상을 나타냈다 (Fig. 2). 전체적으로 Apilactobacillus속 세균이 여러 시료에서 높은 비율로 검출되었으며, 특히 Apilactobacillus kunkeei는 조사된 양봉장 전반에서 주요 세균종으로 확인되었다.
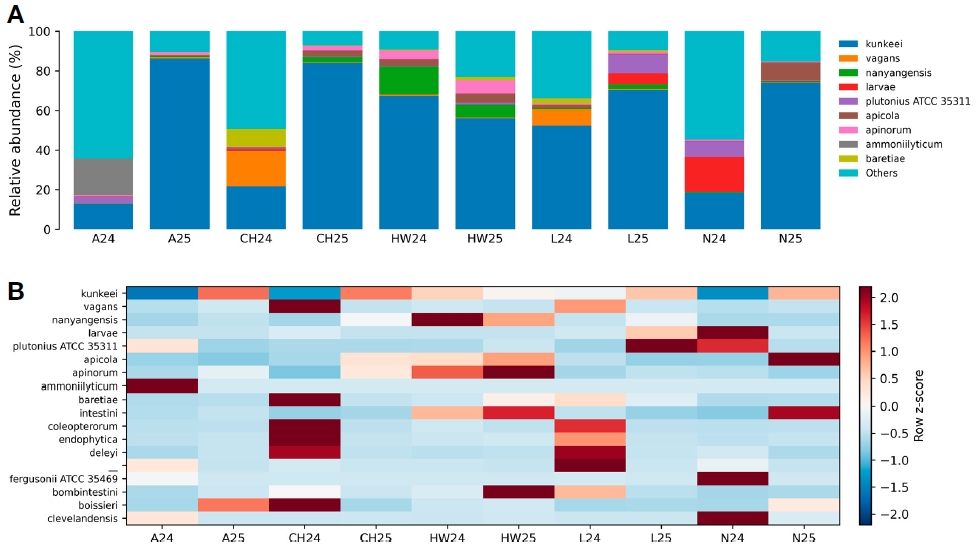
Bacterial community composition of black locust honey collected from five apiaries in 2024 and 2025. (A) Relative abundance of major bacterial taxa and (B) heatmap showing the relative abundance patterns of major bacterial taxa. A, Andong; CH, Cheorwon; HW, Hwasun; L, Icheon; N, Changnyeong.
A. kunkeei의 상대풍부도는 5개 양봉장 중 4개에서 2024 년보다 2025년에 증가하였으며, 안동 (A)은 2024년 12.78%에서 2025년 86.09%로 증가하였다. 반면 화순 (HW)은 67.35%에서 56.04%로 감소하여 다른 양봉장과 상이한 변화 양상을 나타냈다 (Fig. 2A). Heatmap에서도 이러한 양상이 확인되었으며, 동일 양봉장의 두 연도 사이에서 주요 세균 taxa의 상대풍부도 패턴에서 차이를 보였다 (Fig. 2B).
3. 세균군집 구조
Bray-Curtis 비유사도를 기반으로 PCoA를 수행한 결과, PCoA1과 PCoA2는 전체 군집 변이의 각각 41.8%와 23.5%로 나타났다 (Fig. 3). 2024년 시료는 PCoA 공간에서 비교적 넓게 분포한 반면, 2025년 시료는 상대적으로 가까운 영역에 분포하는 양상을 보였다.
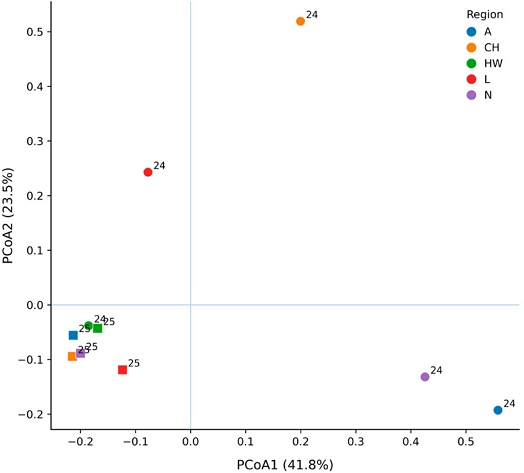
Principal coordinate analysis (PCoA) of bacterial communities in black locust honey collected from five apiaries in 2024 and 2025. PCoA was performed based on Bray-Curtis dissimilarity of bacterial community profiles. PCoA1 and PCoA2 explained 41.8% and 23.5% of the total variation, respectively. Numbers in the figure indicate the year. A, Andong; CH, Cheorwon; HW, Hwasun; L, Icheon; N, Changnyeong.
동일 양봉장의 2024년과 2025년 군집 프로파일은 PCoA 공간에서 서로 다른 위치에 분포하였으나, 양봉장을 고려한 PERMANOVA 분석에서는 연도 간 군집 조성의 차이가 통계적으로 유의하지 않았다 (pseudo-F=2.630, R2=0.247, P=0.125). 두 시점 간 군집 변화의 정도는 양봉장에 따라 차이를 보였다.
4. 양봉장의 연도 간 세균군집 변동
같은 양봉장에서 2024년과 2025년 사이의 세균군집 변화 정도를 비교하기 위해 두 시점의 군집 프로파일 간 Bray-Curtis 비유사도를 산출하였다 (Fig. 4). 연도 간 비유사도는 양봉장에 따라 0.320에서 0.864의 범위를 나타냈다. 안동 (A)이 가장 높은 값 (0.864)을 보였으며, 창녕 (N, 0.790)과 철원 (CH, 0.758)도 비교적 높은 값을 나타냈다. 반면 화순 (HW)은 0.320으로 가장 낮았으며, 이천 (L)은 0.478로 나타났다.
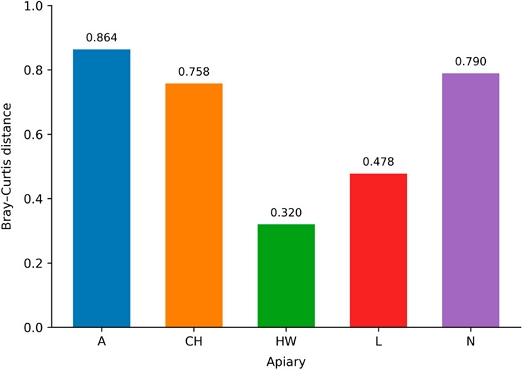
Bray-Curtis dissimilarity of bacterial communities between 2024 and 2025 within the same apiaries. Bray-Curtis dissimilarity was calculated between the representative bacterial community profiles of the two years for each apiary. A, Andong; CH, Cheorwon; HW, Hwasun; L, Icheon; N, Changnyeong.
고 찰
본 연구에서 아까시꿀의 세균군집 알파다양성은 동일 양봉장에서도 두 시기 사이에 서로 다른 변화 양상을 나타냈다. Observed ASVs는 조사된 5개 양봉장 모두에서 2025년에 증가한 반면, Shannon diversity index는 화순을 제외한 4개 양봉장에서 감소하였다. Observed ASVs는 군집 내에서 검출된 ASV의 수, 즉 풍부도를 나타내는 반면, Shannon index는 풍부도와 함께 군집을 구성하는 분류군의 상대적 분포를 반영하므로 두 지표의 변화가 반드시 동일한 방향으로 나타나는 것은 아니다 (Cassol et al., 2025). 기존 국내 아까시꿀에서도 시료에 따라 Observed ASVs와 Shannon diversity가 서로 다른 범위로 나타나 세균군집의 풍부도와 다양성에 차이가 있음이 보고된 바 있다 (Kim et al., 2025). 또한 꿀의 세균군집은 지역뿐 아니라 채집 시기에 따라서도 달라질 수 있으며, 꿀벌이 이용하는 식물자원과 주변 환경의 시간적 변화가 이러한 군집 변동과 관련될 가능성이 보고되고 있다 (Tiusanen et al., 2024). 따라서 이러한 결과는 검출되는 세균의 풍부도 증가가 반드시 군집 전체의 다양성 증가를 의미하지 않으며, 군집 내 상대풍부도 분포의 변화와 함께 해석할 필요가 있음을 보여준다.
세균군집 조성에서도 시기와 양봉장에 따른 변화가 관찰되었다. Apilactobacillus kunkeei는 조사된 아까시꿀의 주요 세균종으로 나타났으며, 상대풍부도는 5개 양봉장 중 4개에서 2025년에 증가하였다. 특히 안동에서는 12.78%에서 86.09%로 크게 증가한 반면, 화순에서는 67.35%에서 56.04%로 감소하여 양봉장에 따라 서로 다른 양상을 보였다. A. kunkeei는 꿀벌과 밀접하게 연관된 세균으로 꿀, 화밀 및 꿀벌의 소화기관을 포함한 다양한 환경에서 검출되는 것으로 알려져 있다. 서로 다른 화분 기원의 꿀을 분석한 연구에서도 A. kunkeei가 특정 꿀에서 우점 세균으로 나타났으며, 꿀의 세균군집 조성이 화분 및 화밀 기원에 따라 달라질 가능성이 보고되었다 (Stavropoulou et al., 2023). 실제 Apis cerana 꿀의 16S rRNA gene 분석에서도 A. kunkeei는 검출된 유산균 가운데 가장 풍부한 종으로 확인되었다 (Lanh et al., 2024). 최근에는 꿀벌의 crop에서 A. kunkeei가 주요 구성 세균으로 확인되었으며, strain 수준에서 계절과 꿀벌 종에 따른 차이가 나타날 가능성도 보고되었다 (Warren et al., 2025). 주요 세균 분류군의 대표 ASV에 대한 BLAST 결과를 추가로 검토한 결과, A. kunkeei, Paenibacillus larvae 및 Melissococcus plutonius는 해당 종과 높은 sequence similarity를 나타낸 반면, 일부 분류군에서는 복수의 근연종이 유사한 수준의 일치도를 나타냈다. 따라서 본 연구와 같이 16S rRNA 유전자의 V3-V4 영역을 기반으로 한 세균 분류에서는 일부 분류군의 종 수준 해석에 주의가 필요하다. 이러한 선행 연구를 고려하면, 본 연구에서 확인된 A. kunkeei의 상대풍부도 변화는 꿀의 세균군집이 두 시기 사이에 서로 다른 양상을 나타낼 수 있음을 보여준다. 다만 본 연구에서는 식물자원 및 기후·환경요인을 직접 조사하지 않았으므로 이러한 변화의 생태적 원인을 특정하기에는 한계가 있다. 또한 여러 양봉장에서 A. kunkeei의 우점도 증가와 Shannon diversity 감소가 함께 관찰되었으나, 제한된 생물학적 표본수로 인해 두 변수 간의 직접적인 연관성은 평가하지 않았으며 이에 대해서는 추가적인 검증이 필요하다.
Bray-Curtis 비유사도 기반 PCoA에서는 동일 양봉장의 2024년과 2025년 세균군집이 서로 다른 위치에 분포하여 두 시기 사이의 군집 조성 변화를 확인할 수 있었다. 그러나 양봉장을 고려한 PERMANOVA에서는 연도 간 세균군 집 조성의 차이가 통계적으로 유의하지 않았으며 (R2=0.247, P=0.125), 이는 조사된 양봉장 전반에서 일관된 연도 효과가 나타났다고 해석하기 어렵다는 것을 의미한다. 동일 양봉장에서 한 계절 동안 꿀벌의 장내 세균군집을 반복 조사한 연구에서는 시기에 따라 알파다양성과 주요 세균의 조성이 변화하였으며, 환경 및 식이 조건이 안정적으로 유지된 기간에는 군집 변화가 상대적으로 적게 나타났다 (Ludvigsen et al., 2015). 또한 서로 다른 계절적·기후적 조건에서 꿀벌의 세균군집을 비교한 연구에서도 시기별 군집 조성에 유의한 차이가 나타났으며, 이러한 차이는 기후 조건과 개화식물에 따른 영양자원의 변화와 관련될 가능성이 제시되었다 (Papp et al., 2022). 꿀, 꿀벌 및 꽃을 함께 조사한 최근 연구에서도 채집 시기가 세균군집 구조에 영향을 미칠 수 있음이 보고되었다 (Tiusanen et al., 2024). 이러한 선행 연구와 비교하면, 우리의 결과는 조사된 양봉장에서 두 연도 사이의 세균군집 변화 정도가 생산지에 따라 다를 가능성을 보여주는 탐색적 결과로 해석할 수 있다.
동일 양봉장의 두 시점 간 Bray-Curtis 비유사도가 0.320~0.864의 범위를 나타낸 것도 이러한 해석을 뒷받침한다. 안동, 창녕 및 철원에서는 상대적으로 높은 비유사도가 나타난 반면, 화순에서는 두 시기 사이의 차이가 가장 작았다. 그러나 본 연구에서는 이러한 차이의 원인이 될 수 있는 식물자원, 기후·환경 조건 및 양봉장 관리요인을 조사하지 않았으므로 화순에서 나타난 변화 양상의 원인을 특정하기 어렵다. 따라서 이러한 결과를 화순 지역의 일반적인 특성이나 세균군집의 시간적 안정성을 의미하는 것으로 확대하여 해석하기보다는 조사된 두 시점에서 관찰된 양상으로 제한하여 해석할 필요가 있다. 최근 꿀에 존재하는 생물학적 DNA 정보는 지리적·식물학적 기원을 추적하기 위한 잠재적 지표로 연구되고 있다. Pathiraja et al. (2023)은 서로 다른 지리적 기원의 꿀을 eDNA 메타바코딩으로 분석하여 세균 DNA 조성이 지리적 기원에 따라 차이를 나타낼 수 있음을 보고하였으며, Sabater et al. (2024)은 메타게놈 프로파일을 기반으로 한 기계학습을 통해 지리적 기원과 관련된 미생물 바이오마커의 활용 가능성을 제시하였다. 또한 Paluoja et al. (2025)은 대규모 honey bulk DNA metagenomics를 통해 꿀의 생물학적 DNA 정보가 식물학적 조성 및 원산지뿐 아니라 생산 환경과 꿀벌 건강에 관한 정보를 제공할 가능성을 제시하였다. 이러한 연구들이 꿀의 생물학적 프로파일이 지리적·환경적 정보를 제공할 가능성을 보여준다면, 본 연구의 결과는 이러한 프로파일을 활용하기에 앞서 동일 생산지에서의 시간적 안정성도 함께 평가할 필요가 있음을 보여준다.
마지막으로 본 연구는 동일 양봉장에서 서로 다른 두 시기에 생산된 아까시꿀을 비교함으로써 세균군집의 시간적 변동 가능성을 탐색하였다는 데 의미가 있다. 다만 본 연구에서는 5개 지역의 동일 양봉장에서 각 연도에 하나의 꿀 시료를 채집하여 분석하였으며, 개별 봉군을 생물학적 반복으로 구성하지 않았다. 또한 동일 시료의 반복 분석은 분석과정의 재현성을 확인하기 위한 기술적 반복이므로 양봉장 내 봉군 수준의 생물학적 변이를 평가하는 데에는 한계가 있다. 두 연도의 시료는 각 연도별로 독립적으로 실험 및 염기서열 분석이 수행되었으므로 연도에 따른 차이와 분석 batch의 영향을 완전히 분리하기에는 한계가 있다. 또한 본 연구에서는 PCR negative control은 수행하였지만 extraction blank, library negative control 및 mock community는 포함하지 않았다. 따라서 낮은 상대풍부도를 갖는 분류군에 있어 실험과정에서 유입될 수 있는 미량 오염의 영향을 완전히 배제할 수 없으므로 해석에 주의가 필요하다. 현재의 결과를 특정 연도에 따른 일반적인 변화로 확대하여 해석하기보다는 동일 생산지에서도 세균군집이 시간적으로 변동할 수 있음을 보여주는 탐색적 결과로 보는 것이 적절한 것으로 판단된다. 최근에는 동일 양봉장의 여러 봉군을 생물학적 반복으로 구성하여 2년에 걸쳐 반복 조사하는 장기간의 연구도 수행되고 있어 (Iorizzo et al., 2026), 향후 아까시꿀에서도 동일 지역 내 여러 양봉장을 포함한 시료 간 분석과 다년간의 반복 조사가 필요하다. 이를 통해 지역 내 변이와 지역 간 차이, 시간적 변동을 구분하여 평가할 수 있을 것이다. 나아가 식물자원과 기후·환경자료를 세균군집 자료와 함께 분석한다면 시간적 변동을 유발하는 생태적 요인을 보다 구체적으로 설명할 수 있을 것이다. 이러한 검증은 향후 꿀의 세균군집을 원산지 판별이나 생산 환경을 반영하는 생물학적 지표로 활용하기 위한 기초자료가 될 수 있을 것으로 판단된다.
Acknowledgments
본 연구는 2026년도 농촌진흥청 국립농업과학원 전문연구원 과정 지원사업에 의해 이루어진 것이며 국립농업과학원 농업과학기반기술연구 (과제번호: PJ01745703)에 의하여 수행되었습니다.
References
-
Almeida, E. L., C. Ribiere, W. Frei, D. Kenny, M. F. Coffey and P. W. O’Toole. 2023. Geographical and seasonal analysis of the honeybee microbiome. Microb. Ecol. 85: 765-778.
[https://doi.org/10.1007/s00248-022-01986-x]

-
Anderson, K. E., T. H. Sheehan, B. M. Mott, P. Maes, L. Snyder, M. R. Schwan, A. Walton, B. M. Jones and V. Corby-Harris. 2013. Microbial ecology of the hive and pollination landscape: Bacterial associates from floral nectar, the alimentary tract and stored food of honey bees (Apis mellifera). PLoS ONE 8: e83125.
[https://doi.org/10.1371/journal.pone.0083125]
-
Bolger, A. M., M. Lohse and B. Usadel. 2014. Trimmomatic: a flexible trimmer for Illumina sequence data. Bioinformatics 30: 2114-2120.
[https://doi.org/10.1093/bioinformatics/btu170]
-
Bolyen, E., J. R. Rideout, M. R. Dillon, N. A. Bokulich, C. C. Abnet, G. A. Al-Ghalith, H. Alexander, E. J. Alm, M. Arumugam, F. Asnicar, Y. Bai, J. E. Bisanz, K. Bittinger, A. Brejnrod, C. J. Brislawn, C. T. Brown, B. J. Callahan, A. M. Caraballo-Rodriguez, J. Chase, E. K. Cope, R. Da Silva, C. Diener, P. C. Dorrestein, G. M. Douglas, D. M. Durall, C. Duvallet, C. F. Edwardson, M. Ernst, M. Estaki, J. Fouquier, J. M. Gauglitz, S. M. Gibbons, D. L. Gibson, A. Gonzalez, K. Gorlick, J. Guo, B. Hillmann, S. Holmes, H. Holste, C. Huttenhower, G. A. Huttley, S. Janssen, A. K. Jarmusch, L. Jiang, B. D. Kaehler, K. B. Kang, C. R. Keefe, P. Keim, S. T. Kelley, D. Knights, I. Koester, T. Kosciolek, J. Kreps, M. G. I. Langille, J. Lee, R. Ley, Y. X. Liu, E. Loftfield, C. Lozupone, M. Maher, C. Marotz, B. D. Martin, D. McDonald, L. J. McIver, A. V. Melnik, J. L. Metcalf, S. C. Morgan, J. T. Morton, A. T. Naimey, J. A. Navas-Molina, L. F. Nothias, S. B. Orchanian, T. Pearson, S. L. Peoples, D. Petras, M. L. Preuss, E. Pruesse, L. B. Rasmussen, A. Rivers, M. S. Robeson II, P. Rosenthal, N. Segata, M. Shaffer, A. Shiffer, R. Sinha, S. J. Song, J. R. Spear, A. D. Swafford, L. R. Thompson, P. J. Torres, P. Trinh, A. Tripathi, P. J. Turnbaugh, S. Ul-Hasan, J. J. J. van der Hooft, F. Vargas, Y. Vazquez-Baeza, E. Vogtmann, M. von Hippel, W. Walters, Y. Wan, M. Wang, J. Warren, K. C. Weber, C. H. D. Williamson, A. D. Willis, Z. Z. Xu, J. R. Zaneveld, Y. Zhang, Q. Zhu, R. Knight and J. G. Caporaso. 2019. Reproducible, interactive, scalable and extensible microbiome data science using QIIME 2. Nat. Biotechnol. 37: 852-857.
[https://doi.org/10.7287/peerj.preprints.27295v1]
-
Callahan, B. J., P. J. McMurdie, M. J. Rosen, A. W. Han, A. J. A. Johnson and S. P. Holmes. 2016. DADA2: High-resolution sample inference from Illumina amplicon data. Nat. Methods 13: 581-583.
[https://doi.org/10.1038/nmeth.3869]
-
Cassol, I., M. Ibañez and J. P. Bustamante. 2025. Key features and guidelines for the application of microbial alpha diversity metrics. Sci. Rep. 15: 622.
[https://doi.org/10.1038/s41598-024-77864-y]
-
Iorizzo, M., G. Pannella, M. Succi, S. Ganassi, D. Di Criscio, C. Tedino, G. Albanese and A. De Cristofaro. 2026. Seasonal dynamics of the gut microbiota in Apis mellifera ligustica: A two-year longitudinal study. Front. Insect Sci. 6: 1920906.
[https://doi.org/10.3389/finsc.2026.1920906]
-
Kim, S., S. G. Kim, S. M. Han and B. Yoon. 2021. Optimization of practical protocol for residual DNA from honey. J. Apic. 36: 195-206.
[https://doi.org/10.17519/apiculture.2021.09.36.3.195]
-
Kim, S. M., H. M. Choi, P. Im, S. Lee, M. S. Lee, Y. Son, S. Park and S. O. Woo. 2025. Microbial diversity and functions of acacia honey revealed by environmental DNA metabarcoding for geographic origin identification. J. Apic. 40(3): 263-269.
[https://doi.org/10.17519/apiculture.2025.09.40.3.263]
-
Lanh, P. T., B. T. T. Duong, H. T. Thu, N. T. Hoa and D. V. Quyen. 2024. Comprehensive analysis of the microbiome in Apis cerana honey highlights honey as a potential source for the isolation of beneficial bacterial strains. PeerJ 12: e17157.
[https://doi.org/10.7717/peerj.17157]
-
Luca, L., D. Pauliuc and M. Oroian. 2024. Honey microbiota, methods for determining the microbiological composition and the antimicrobial effect of honey - A review. Food Chem. X 23: 101524.
[https://doi.org/10.1016/j.fochx.2024.101524]
-
Ludvigsen, J., A. Rangberg, E. Avershina, M. Sekelja, C. Kreibich, G. V. Amdam and K. Rudi. 2015. Shifts in the midgut/pyloric microbiota composition within a honey bee apiary throughout a season. Microbes Environ. 30(3): 235-244.
[https://doi.org/10.1264/jsme2.ME15019]
-
O’Leary, N. A., M. W. Wright, J. R. Brister, S. Ciufo, D. Haddad, R. McVeigh, B. Rajput, B. Robbertse, B. Smith-White, D. Ako-Adjei, A. Astashyn, A. Badretdin, Y. Bao, O. Blinkova, V. Brover, V. Chetvernin, J. Choi, E. Cox, O. Ermolaeva, C. M. Farrell, T. Goldfarb, T. Gupta, D. Haft, E. Hatcher, V. S. Hlavina, W. Joardar, V. K. Kodali, W. Li, D. Maglott, P. Masterson, K. M. McGarvey, M. R. Murphy, K. O’Neill, S. Pujar, S. H. Rangwala, D. Rausch, L. D. Riddick, C. Schoch, A. Shkeda, S. S. Storz, H. Sun, F. Thibaud-Nissen, I. Tolstoy, R. E. Tully, A. R. Vatsan, C. Wallin, D. Webb, W. Wu, M. J. Landrum, A. Kimchi, T. Tatusova, M. DiCuccio, P. Kitts, T. D. Murphy and K. D. Pruitt. 2016. Reference sequence (RefSeq) database at NCBI: Current status, taxonomic expansion, and functional annotation. Nucleic Acids Res. 44: D733-D745.
[https://doi.org/10.1093/nar/gkv1189]
-
Paluoja, P., M. Vaher, H. Teder, K. Krjutškov, A. Salumets and K. Raime. 2025. Honey bulk DNA metagenomic analysis to identify honey biological composition and monitor honey bee pathogens. npj Sci. Food 9: 91.
[https://doi.org/10.1038/s41538-025-00464-1]
-
Papp, M., L. Békési, R. Farkas, L. Makrai, M. F. Judge, G. Maróti, D. Tőzsér and N. Solymosi. 2022. Natural diversity of the honey bee (Apis mellifera) gut bacteriome in various climatic and seasonal states. PLoS ONE 17(9): e0273844.
[https://doi.org/10.1371/journal.pone.0273844]
-
Pathiraja, D., J. Cho, J. Kim and I.-G. Choi. 2023. Metabarcoding of eDNA for tracking the floral and geographical origins of bee honey. Food Res. Int. 164: 112413.
[https://doi.org/10.1016/j.foodres.2022.112413]
-
Sabater, C., I. Calvete, X. Vázquez, L. Ruiz and A. Margolles. 2024. Tracing the origin and authenticity of Spanish PDO honey using metagenomics and machine learning. Int. J. Food Microbiol. 421: 110789.
[https://doi.org/10.1016/j.ijfoodmicro.2024.110789]
-
Stavropoulou, E., N. Remmas, C. C. Voidarou, G. Vrioni, T. Konstantinidis, S. Ntougias and A. Tsakris. 2023. Microbial community structure among honey samples of different pollen origin. Antibiotics 12(1): 101.
[https://doi.org/10.3390/antibiotics12010101]
-
Tiusanen, M., A. Becker-Scarpitta and H. Wirta. 2024. Distinct communities and differing dispersal routes in bacteria and fungi of honey bees, honey, and flowers. Microb. Ecol. 87: 100.
[https://doi.org/10.1007/s00248-024-02413-z]
-
Warren, M. L., K. Tsuji, L. E. Decker, M. Kishi, J. Yang, A. C. Howe and T. Fukami. 2025. Bacteria in honeybee crops are decoupled from those in floral nectar and bee mouths. Microb. Ecol. 88: 46.
[https://doi.org/10.1007/s00248-025-02544-x]
-
Wirta, H., N. Abrego, K. Miller, T. Roslin and E. Vesterinen. 2021. DNA traces the origin of honey by identifying plants, bacteria and fungi. Sci. Rep. 11: 4798.
[https://doi.org/10.1038/s41598-021-84174-0]
-
Xiong, Z. R., J. H. Sogin and R. W. Worobo. 2023. Microbiome analysis of raw honey reveals important factors influencing the bacterial and fungal communities. Front. Microbiol. 13: 1099522.
[https://doi.org/10.3389/fmicb.2022.1099522]